研究背景
2026 年 4 月,西湖大学董晨院士团队在 Nature Immunology 发表研究,首次鉴定并命名了一种以高表达颗粒酶 K(Granzyme K, GZMK)为特征的新型 CD4⁺ 辅助 T 细胞亚群——TʜK 细胞[1]。作为 Th17 与 Tfh 细胞领域的奠基性学者,董晨团队此前已系统定义了多个 CD4⁺ T 细胞亚群的调控网络。此次 TʜK 细胞的发现,是在经典 Th1/Th2/Th17/Tfh/Treg 五分类体系之外,从单细胞转录组数据出发、经主控转录因子遗传学验证的独立 CD4⁺ T 细胞效应亚群。
这项研究的真正价值,不在于发现了一个新细胞,而在于它示范了如何通过多组学多模态正交验证的严谨逻辑链,将一个单细胞转录组 Cluster 界定为真正的新免疫细胞亚群(Subset)。本文拆解这一范式的完整逻辑链,提炼可复用的新 Subset 界定七步法。
一、从 Cluster 到 Subset:TʜK 细胞对照五大标准的逐项验证
在前文《单细胞Cluster是亚群还是状态?如何界定验证》中,我们系统总结了界定一个新免疫细胞亚群(Subset)所需的五大标准层级。以下逐项对照 TʜK 细胞的验证证据。
表1:TʜK 细胞对照五大标准的逐项验证
| 标准层级 | 具体标准 | TʜK 细胞的核心验证证据 |
|---|---|---|
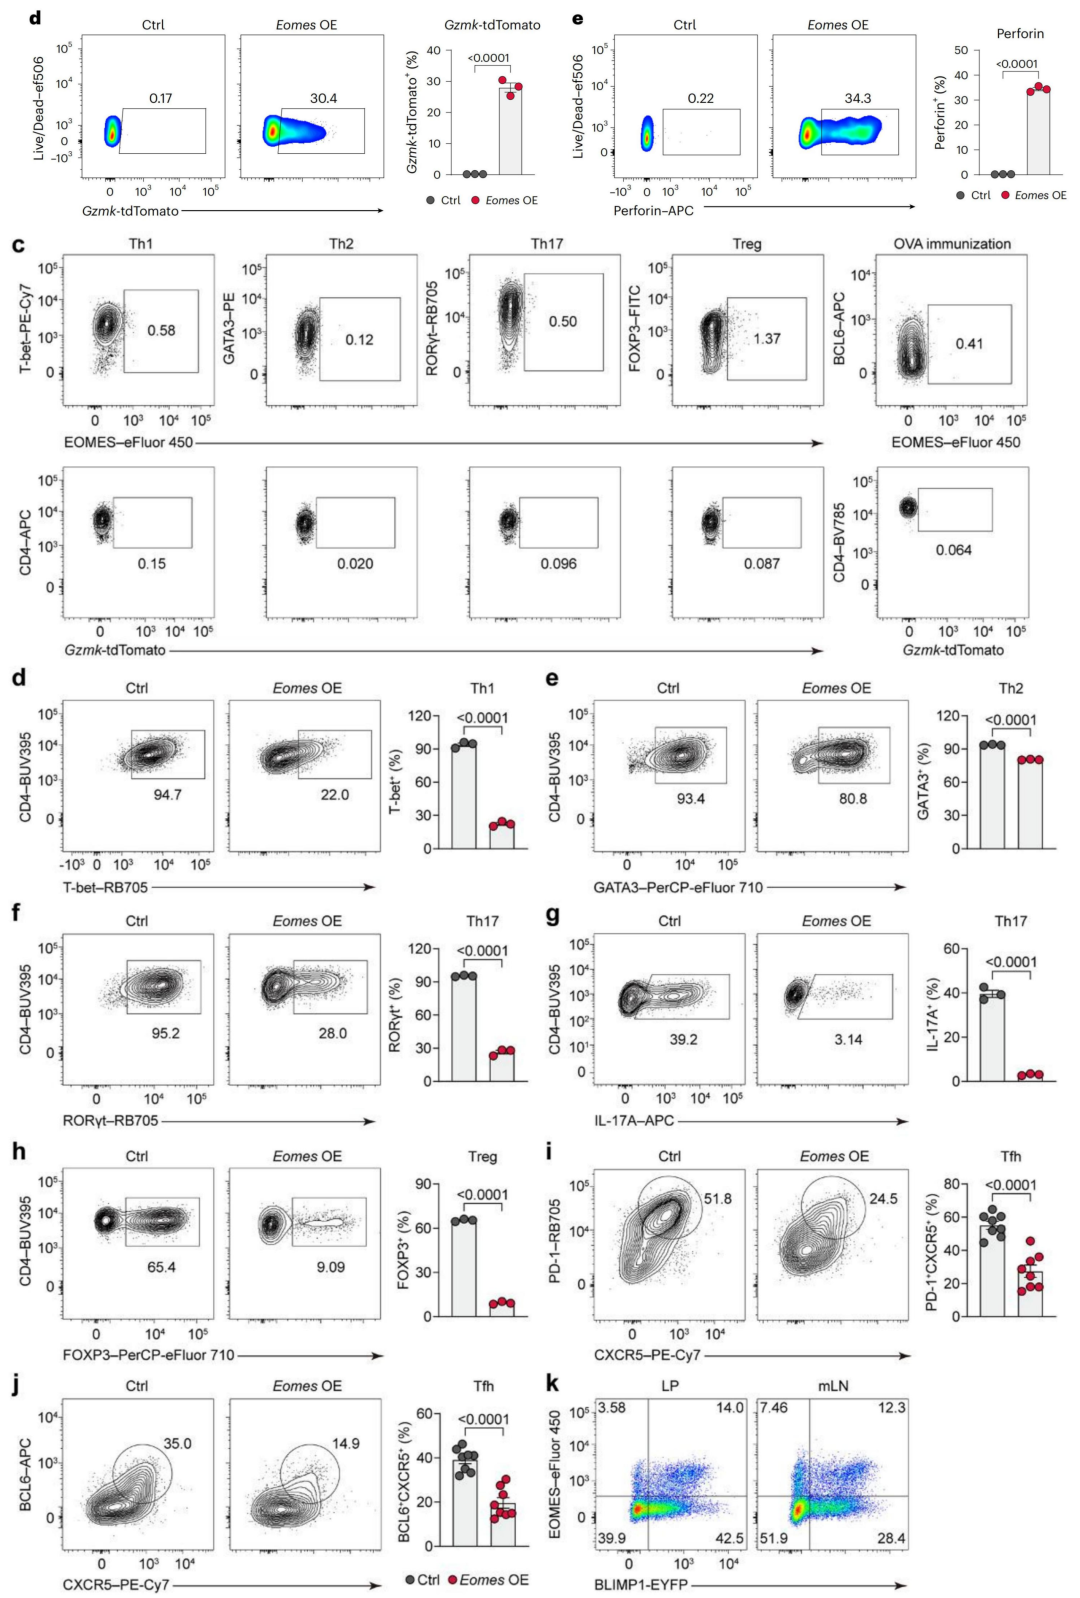
| 必要条件 | 表型独特性 | Gzmk-tdTomato⁺ CD4⁺ T 细胞共表达 EOMES、Perforin,但不表达经典谱系标志物(T-bet、GATA3、RORγt、FOXP3、BCL6),形成独特 DEGs 特征,经流式蛋白水平正交验证确认 |
| 跨物种跨疾病普适性 | 在结肠炎、肿瘤、EAE、LCMV 慢性感染等多疾病模型及人 IBD 和泛癌数据中均能鉴定出该亚群,跨物种、跨疾病的正交验证排除模型特异性 | |
| 界定性条件(一票否决) | 发育起源独立性及主控转录因子表达特性 | 共转移体内竞争实验的正交验证:TʜK 分化不依赖 Th1(T-bet)、Th2(STAT6)、Th17(RORγt)经典路径;由主控转录因子 EOMES 驱动,条件性敲除导致 TʜK 细胞消失——充分性、必要性与直接靶向的三维正交验证锁定 EOMES 为核心调控因子 |
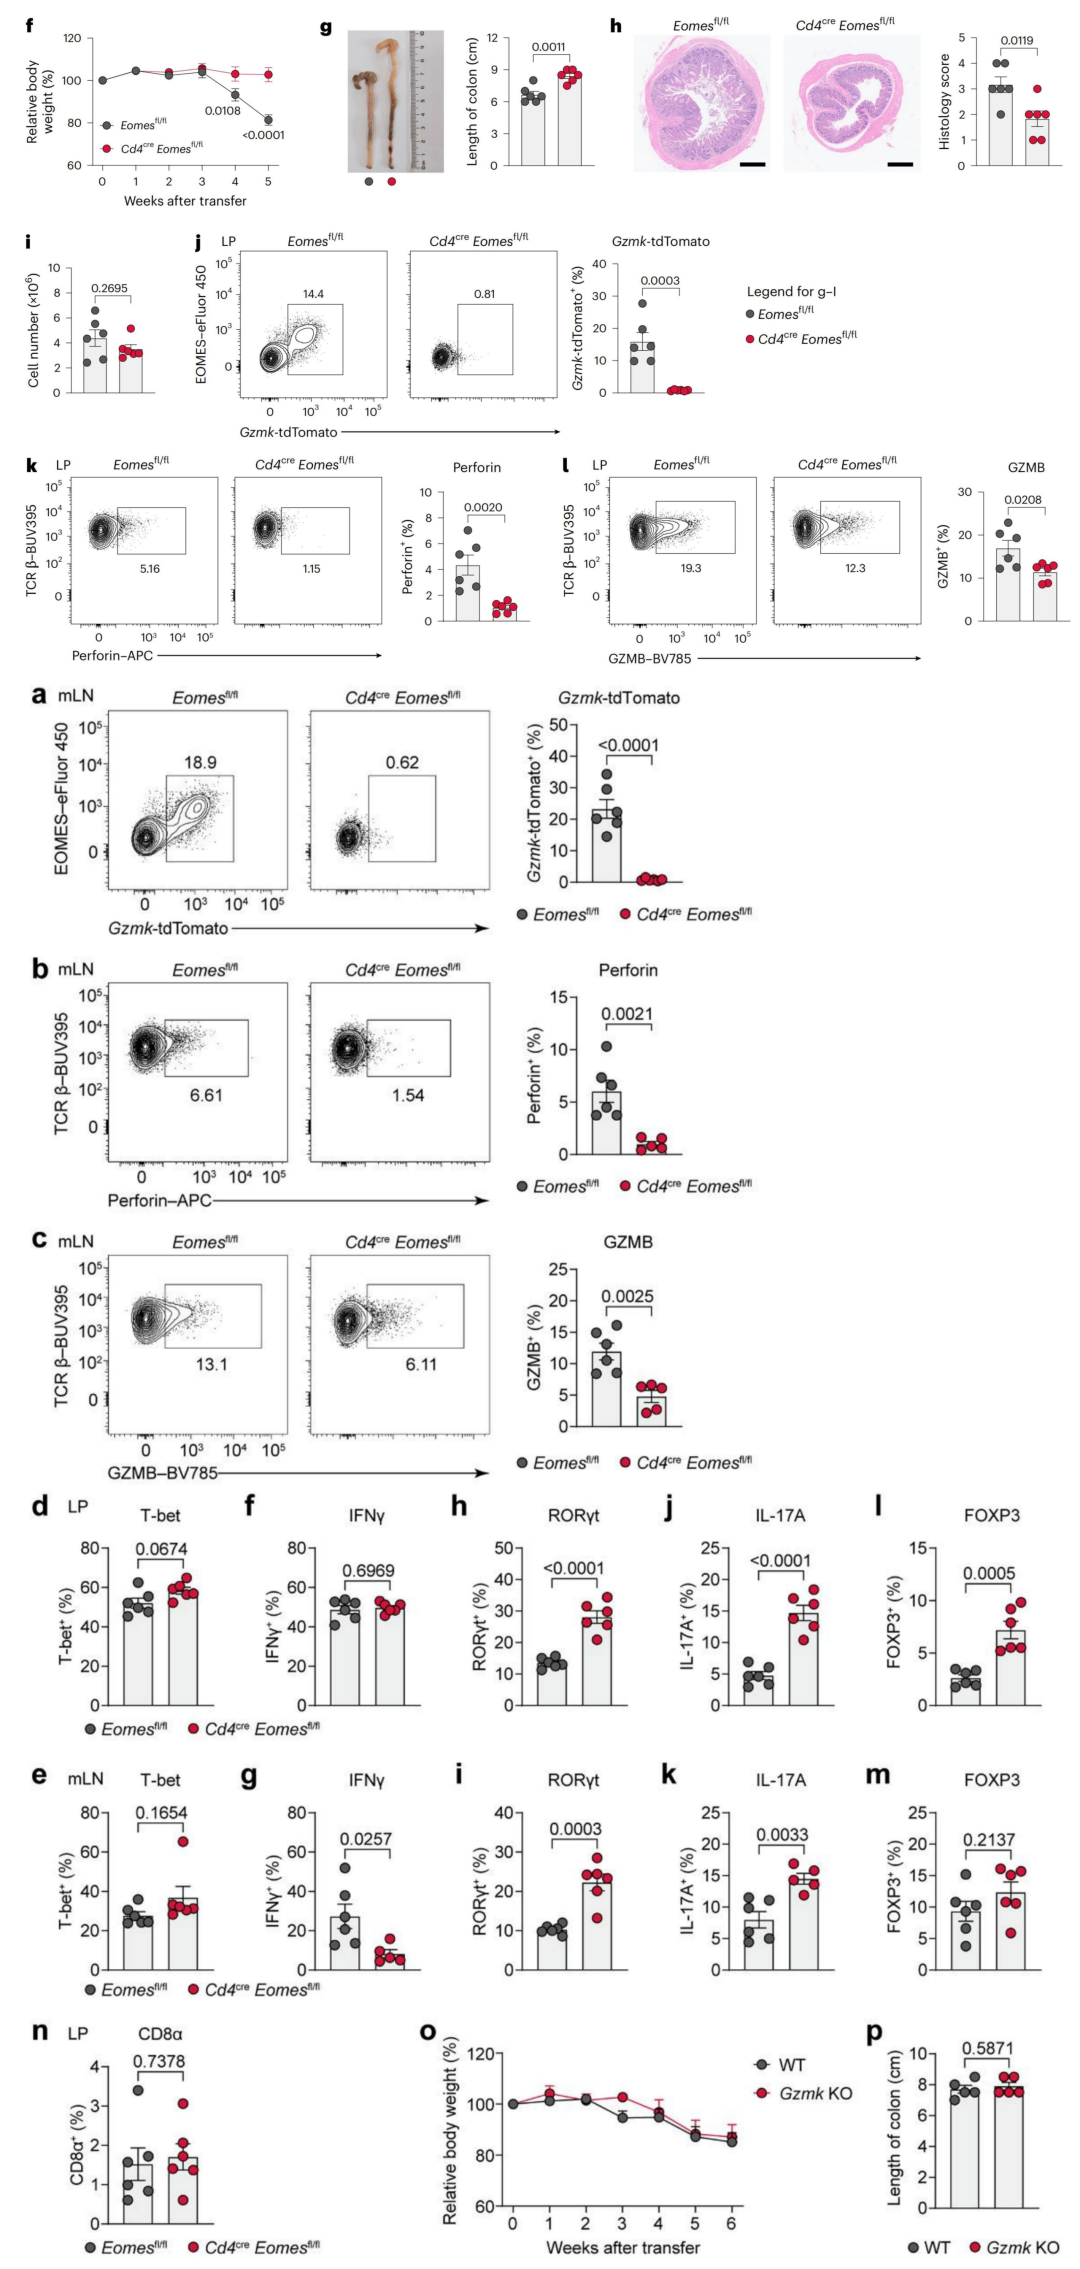
| 价值加成条件 | 功能非冗余性 | Eomes cKO 小鼠结肠炎显著减轻,功能非冗余性的体内正交验证:主控因子敲除→细胞消失→疾病减轻,构成完整因果链条 |
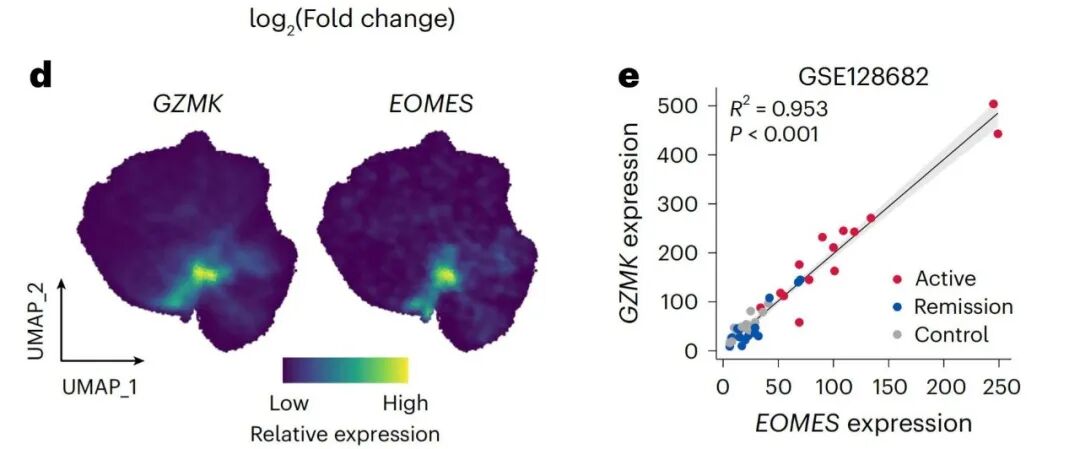
| 临床/疾病相关性 | 人 IBD 活动期黏膜中 GZMK 表达显著升高;泛癌数据中鉴定出该亚群,跨疾病的正交验证赋予其临床转化潜力 |
二、TʜK 细胞界定七步法:从 Cluster 到 Subset 的多模态正交验证
第一步:无偏倚发现——鉴定具有非经典身份的 Cluster
核心科学问题:IBD 中 scRNA-seq 发现的新 Cluster(Gzmkʰⁱᵍʰ CD4⁺ T),究竟是一个未被定义的新亚群(Subset),还是已知亚群在疾病微环境中的功能状态(State)?
研究方法与发现:整合人类 IBD 患者与健康人群、人类泛癌单细胞图谱及小鼠结肠炎模型的 scRNA-seq 数据集,在人类 IBD 中鉴定出 CD4⁺ T 细胞的一个新 Cluster,其 DEGs 特征为高表达 GZMK、不表达经典 CD4⁺ T 细胞谱系标志物,也不与另一类颗粒酶 GZMB 共表达。该 Cluster 在人类 IBD、人类泛癌及小鼠结肠炎中均被稳定鉴定且 DEGs 特征一致。
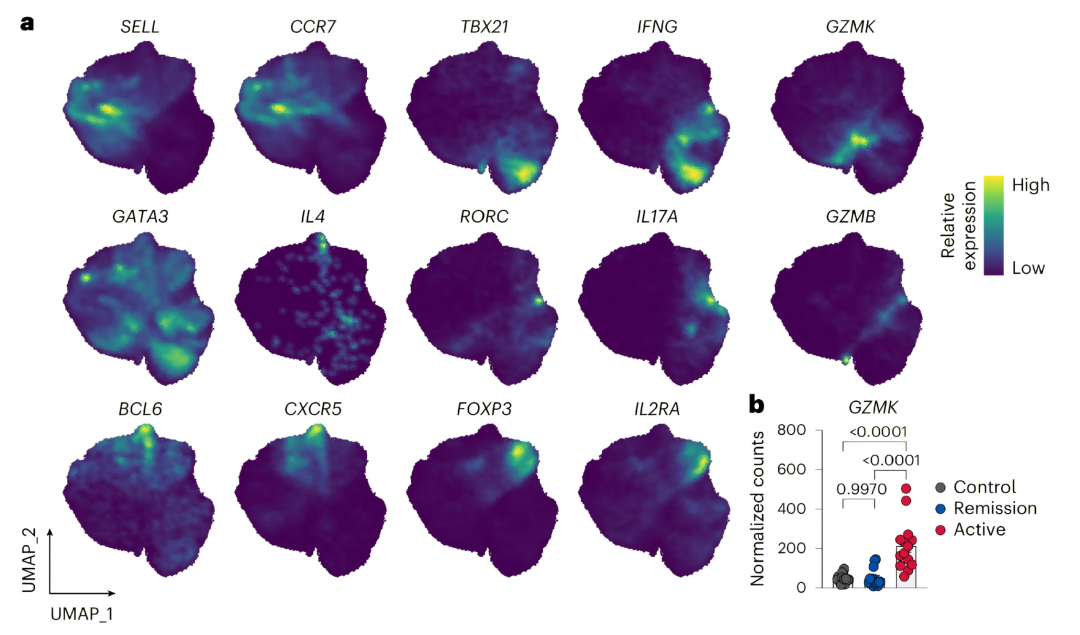
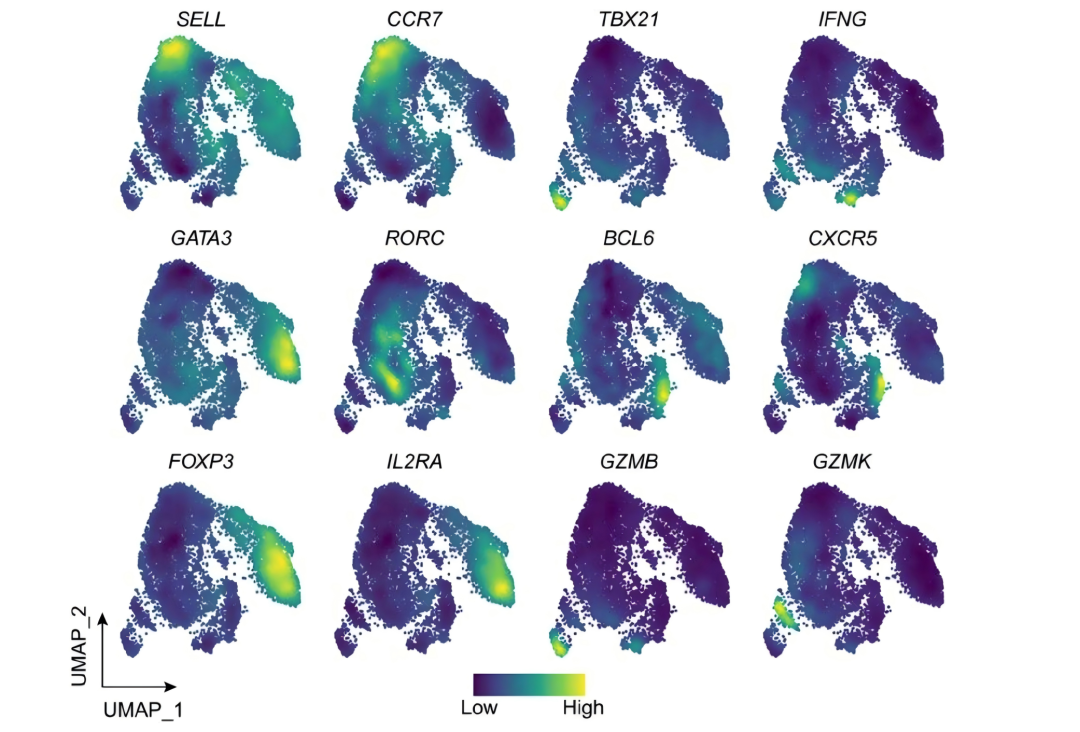
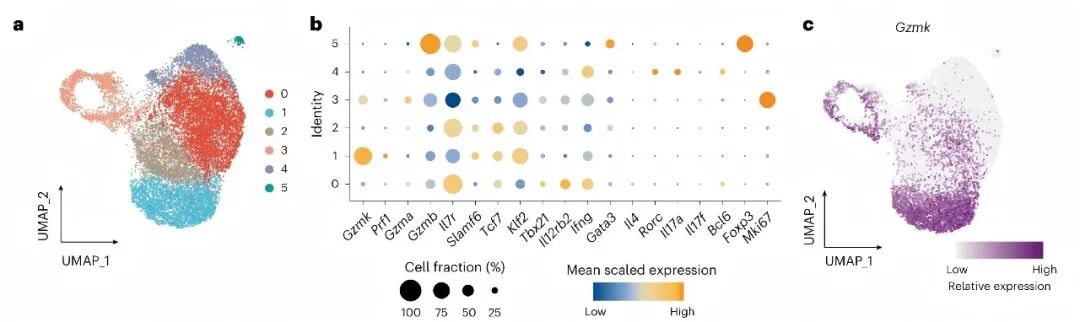
正交验证价值:该 Cluster 跨物种、跨疾病被稳定鉴定,由此从生信发现升级为高置信度的新 Subset 候选对象,排除了物种和疾病特异性。
范式要点:以非经典身份为线索——寻找不表达任何已知谱系标志物却独立成簇的群体;跨物种、跨疾病的普适性是关键判据。
第二步:蛋白水平正交验证——从生信发现到生物学发现
核心科学问题:scRNA-seq 定义的 Gzmkʰⁱᵍʰ CD4⁺ T Cluster 在蛋白质水平真实存在吗?
研究方法与发现:由于缺乏可靠的鼠源 GZMK 流式抗体,研究者构建 Gzmk-P2A-CreERT2-T2A-tdTomato(Gzmk-tdTomato)报告基因小鼠,通过基因示踪实现单细胞水平的蛋白质替代检测;随后以流式细胞术在结肠炎模型的固有层(LP)和肠系膜淋巴结(mLN)中确证,Gzmkʰⁱᵍʰ CD4⁺ T 细胞的蛋白质水平 DEGs 特征与 scRNA-seq 发现一致——其共表达 Perforin、IFNγ 的 MFI 低于经典 Th1 效应细胞,且在稳态下数量极少、肠炎发生时于结肠 LP 大量产生。
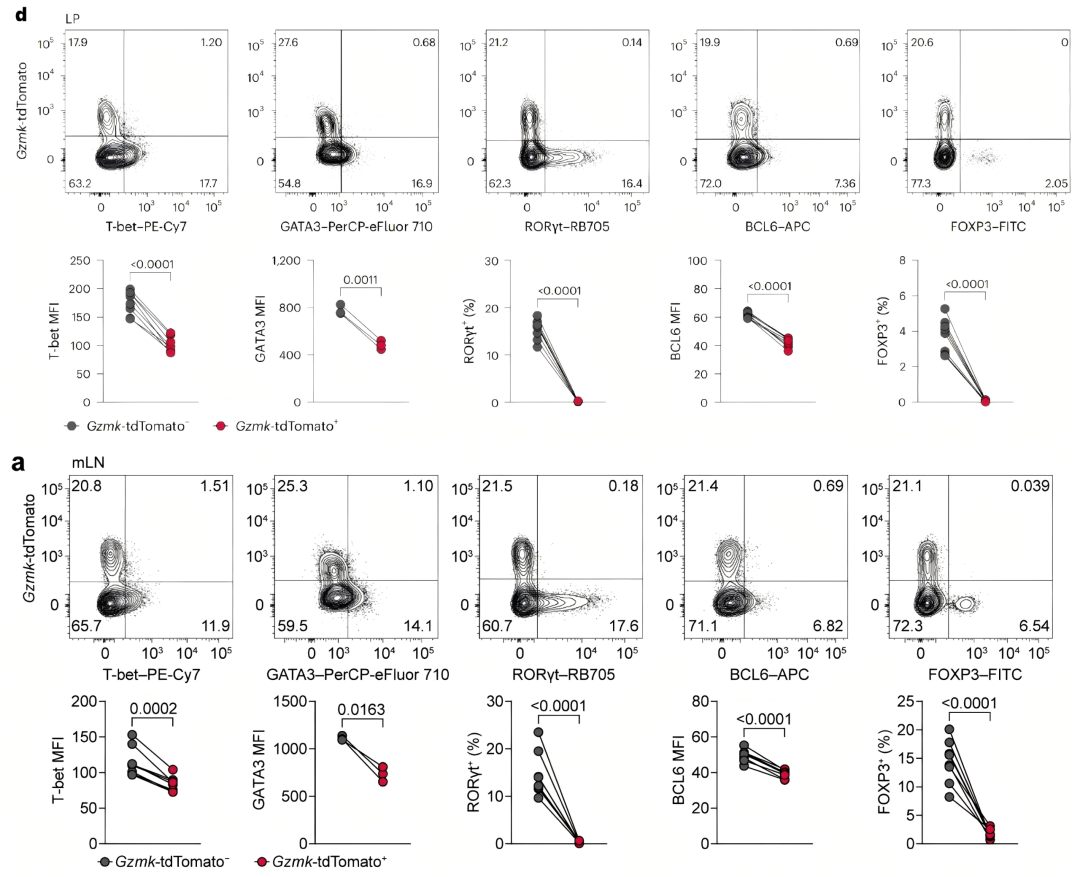
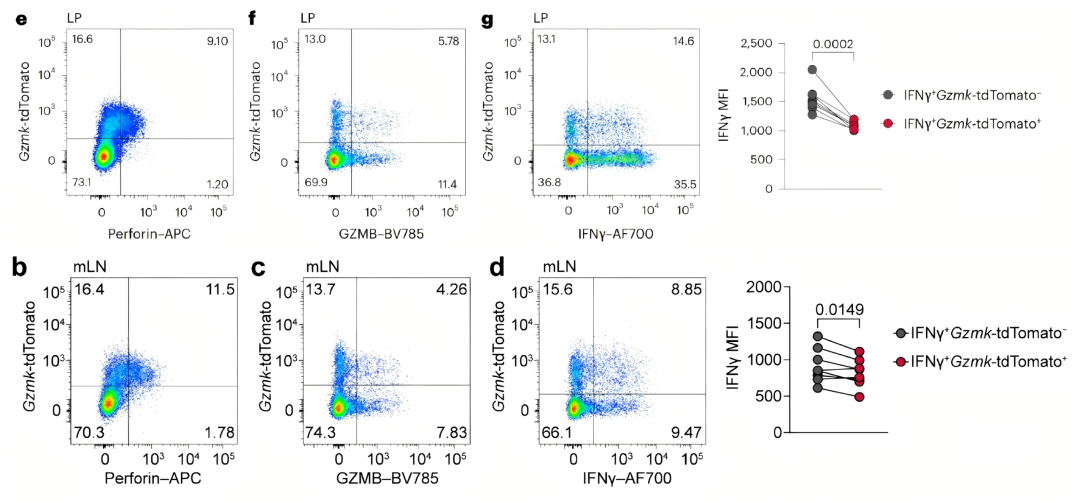
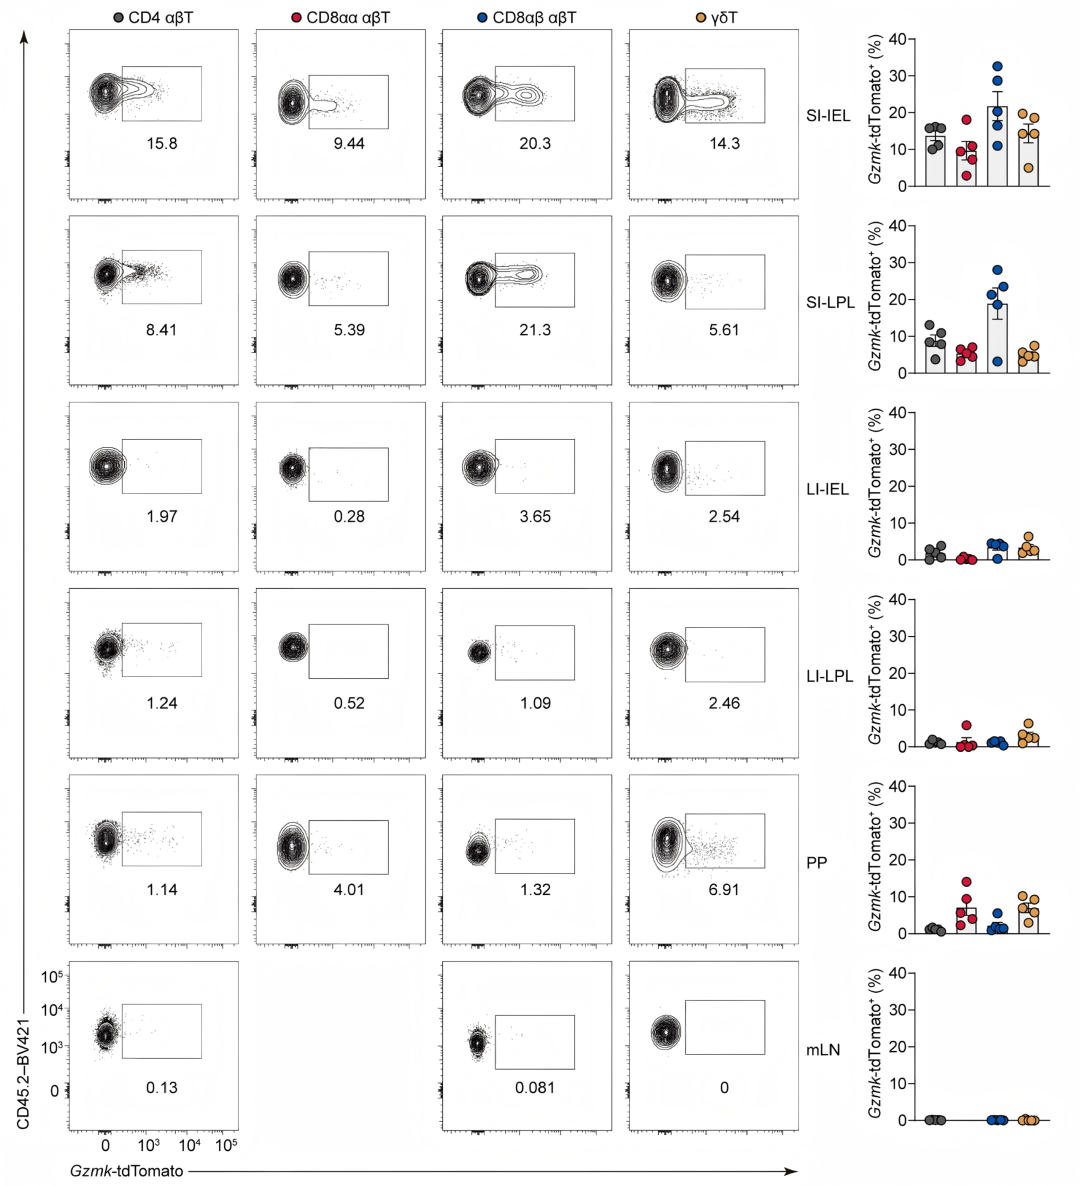
正交验证价值:完成从转录组说它有到蛋白层面它确实存在的跨越,是多模态正交验证链中第一个不可或缺的确证环节。
范式要点:在缺乏可靠流式抗体时,构建报告基因小鼠是替代蛋白检测的精准方案。报告基因示踪联合多参数流式,可在单细胞水平同时验证分型标志物(谱系转录因子)与功能标志物(效应分子)。
第三步:发育起源正交验证——排除已知谱系的依赖性
核心科学问题:Gzmk⁺ CD4⁺ T 细胞的分化是否依赖已知的 Th1、Th2、Th17 经典路径?
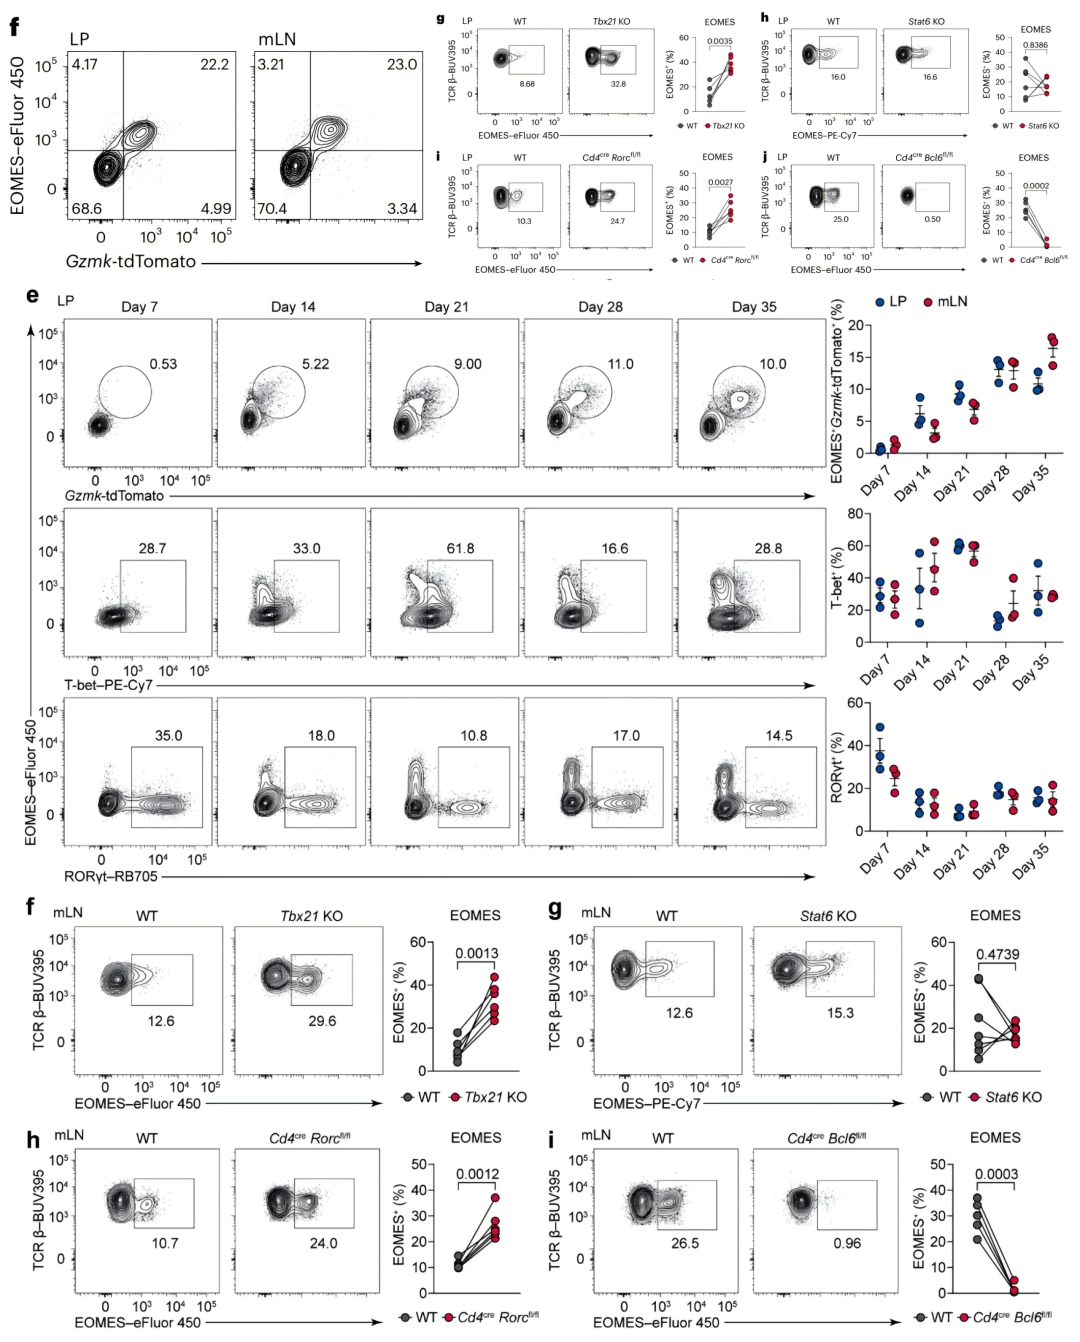
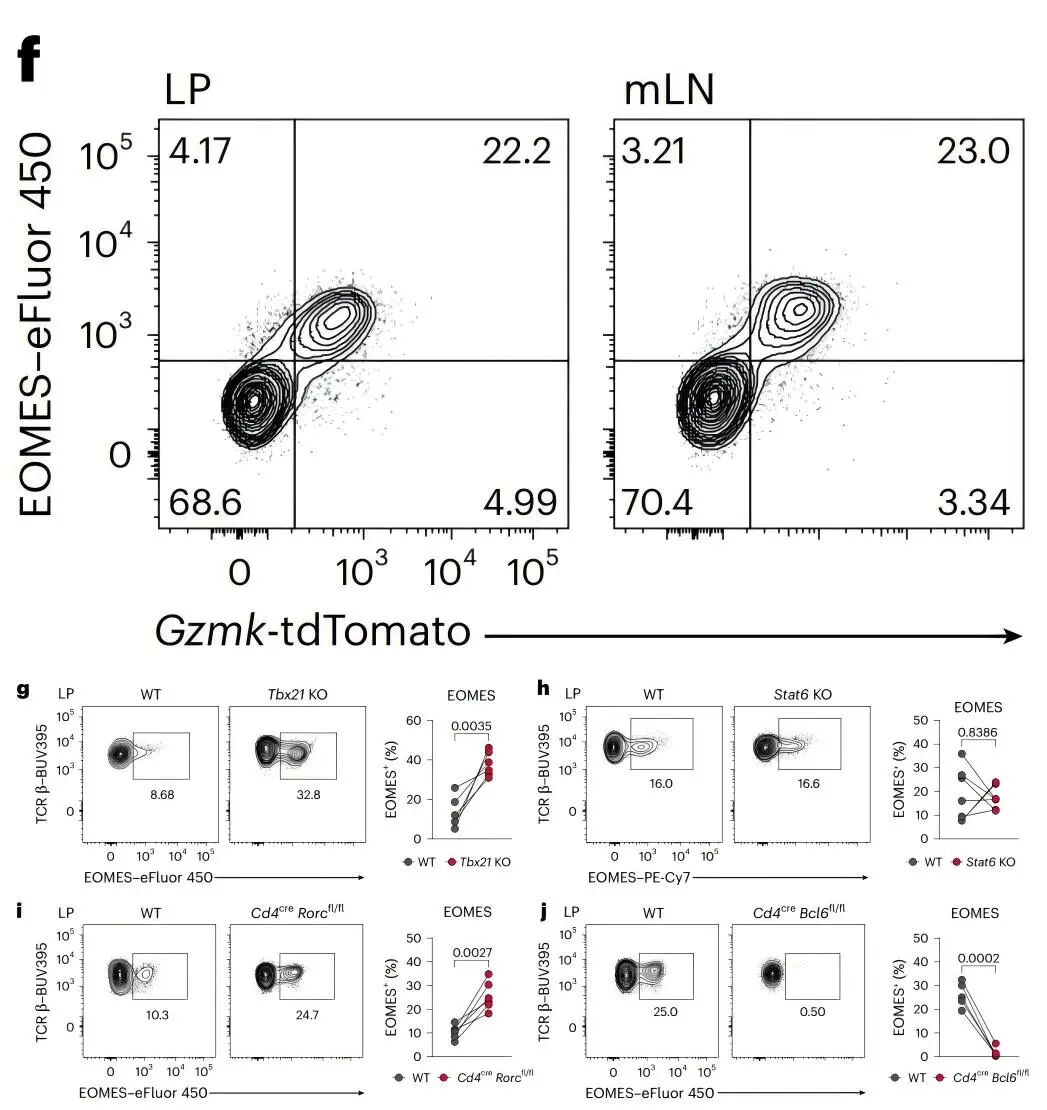
研究方法与发现:采用共转移体内竞争实验——将野生型(CD45.1⁺)与基因敲除(CD45.2⁺)的 naive CD4⁺ T 细胞混合后转移至 Rag1⁻/⁻ 受体小鼠诱导结肠炎。结果显示:
- Tbx21⁻/⁻(Th1 缺陷)下 GZMB 表达显著降低但 Gzmk mRNA 表达保留、Perforin⁺ 比例反而增加;
- Stat6⁻/⁻(Th2 缺陷)下 Gzmk 与 Perforin 表达基本不受影响;
- CD4ᶜʳᵉRorcᶠˡ/ᶠˡ(Th17 缺陷)下 Gzmk 与 Perforin 表达反而升高,提示 RORγt 可能具抑制作用;
- Runx3 缺陷不改变 Gzmk 表达,明确证实 TʜK 细胞与 CD4⁺CD8α⁺ 细胞毒 T 细胞完全独立。
值得注意的是,在 CD4ᶜʳᵉBcl6ᶠˡ/ᶠˡ(Tfh 缺陷)小鼠中,Gzmk 与 Prf1 表达降低,提示 TʜK 细胞毒程序与 Tfh/BCL6 轴存在正向调控关联——这一点将在第四步 EOMES 的上游调控中进一步展开。
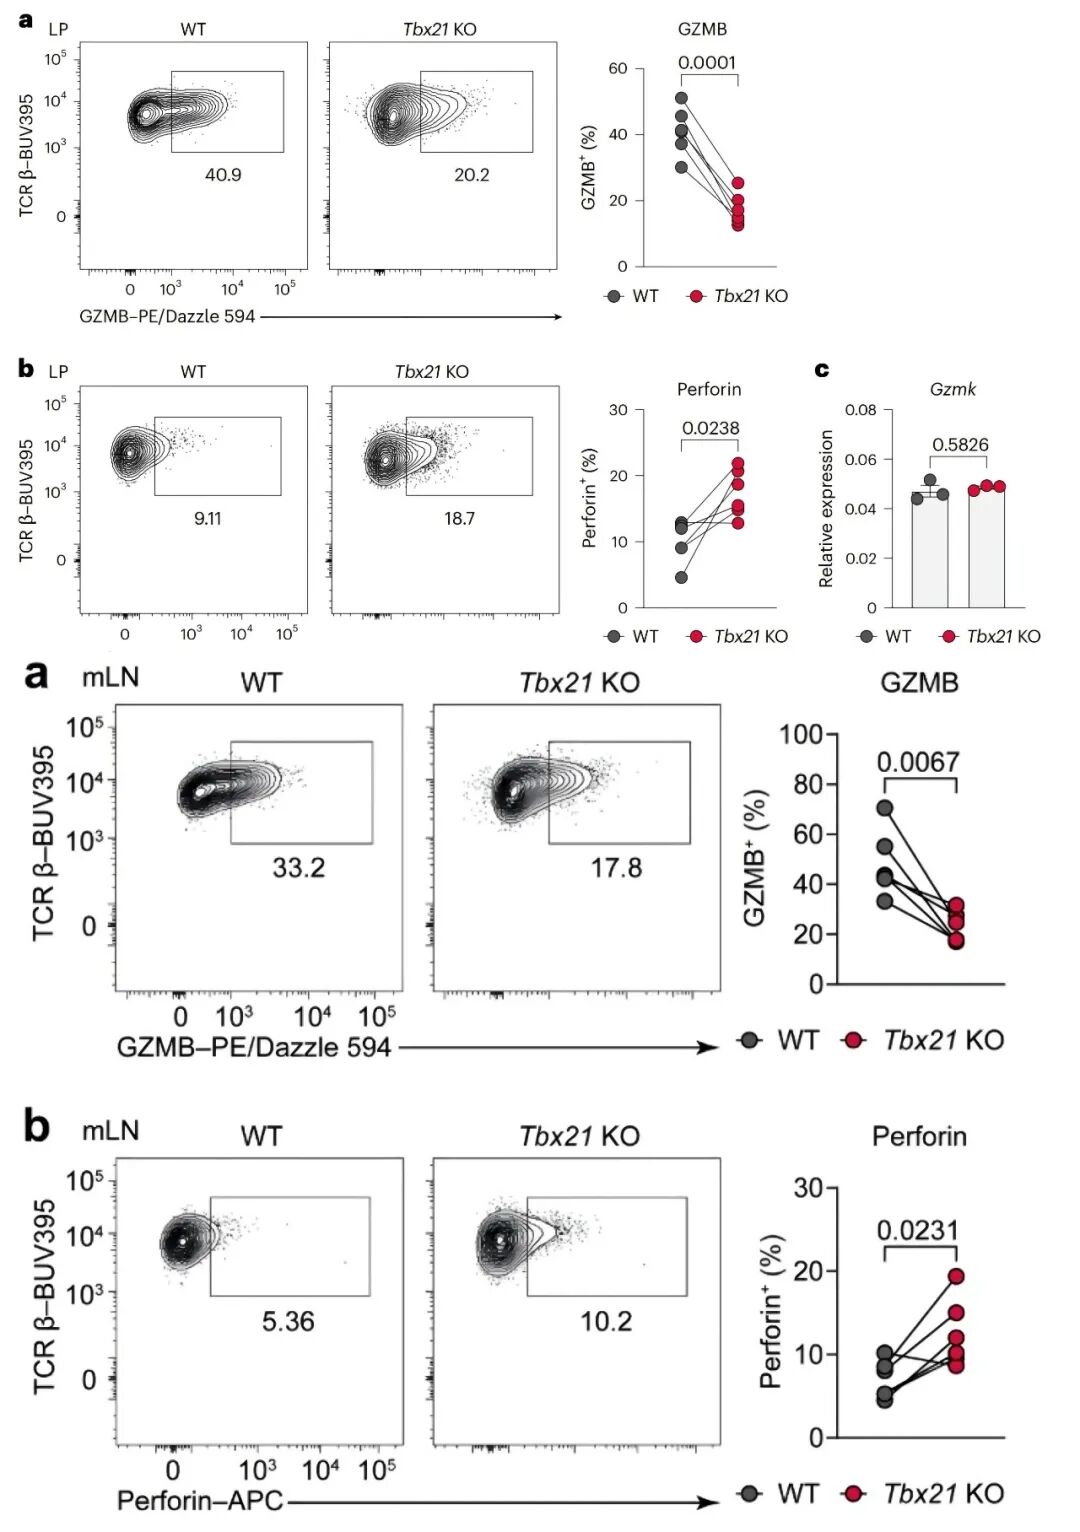
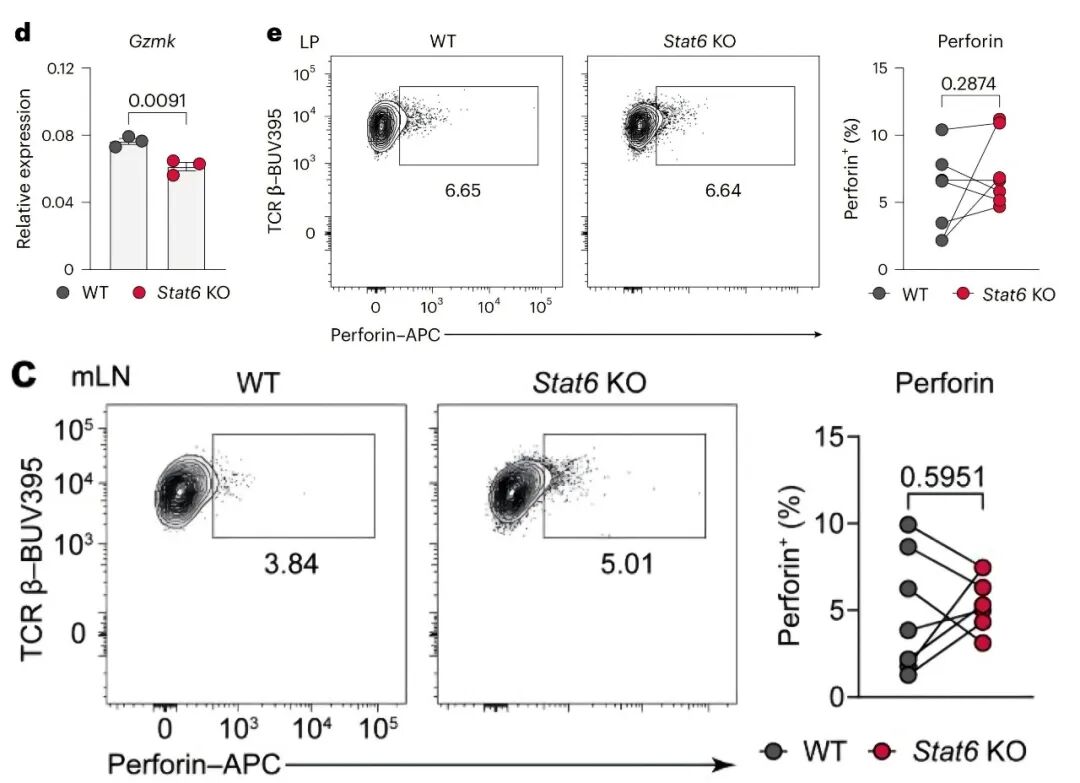
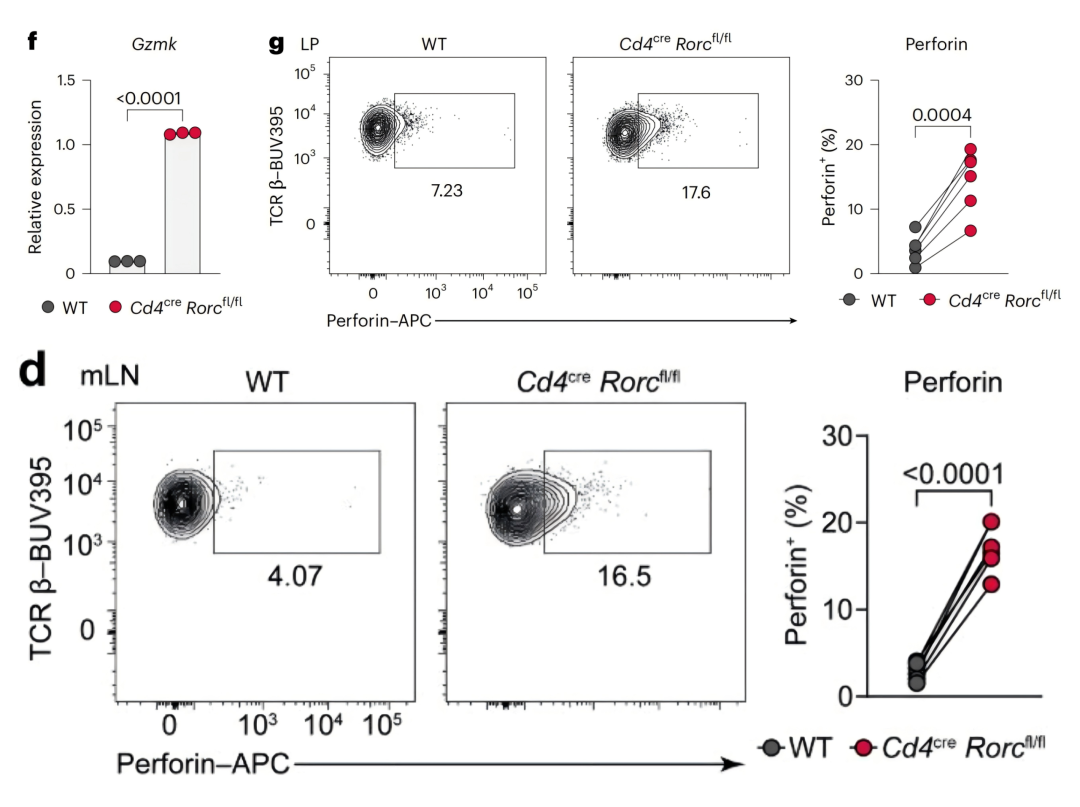
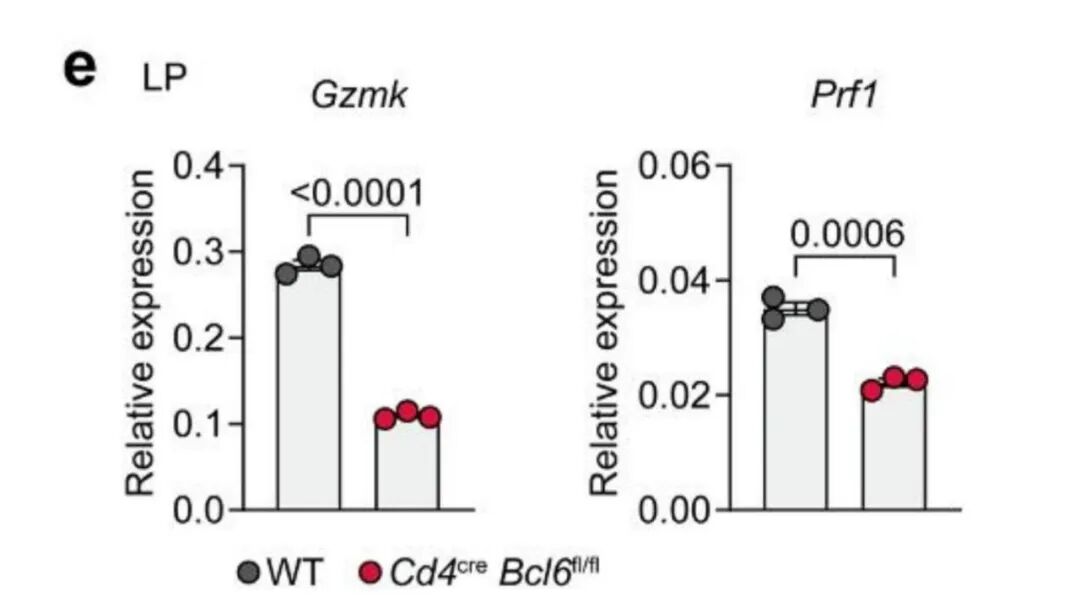
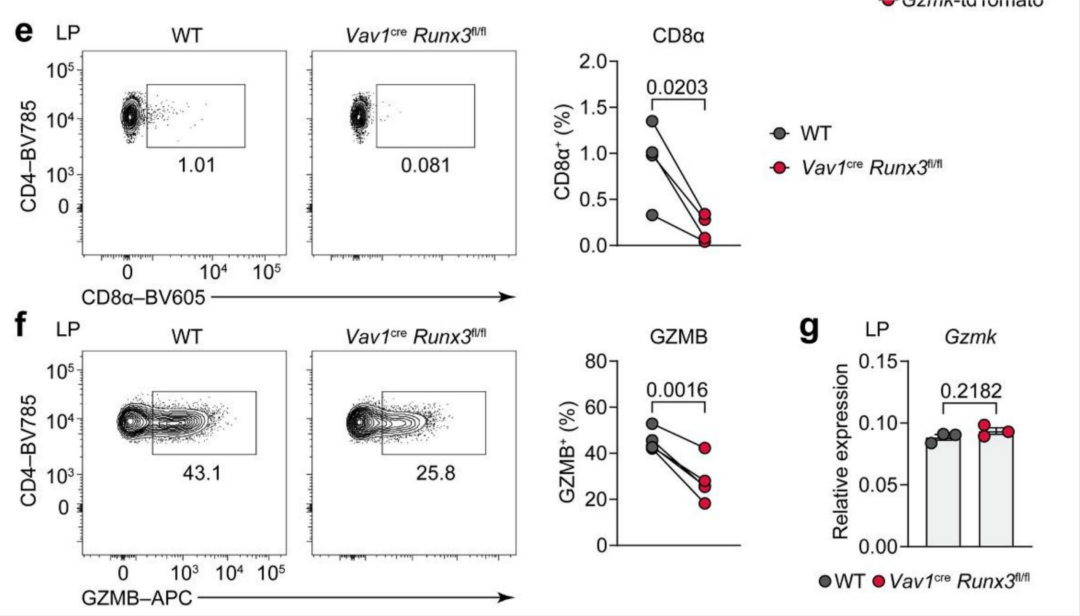
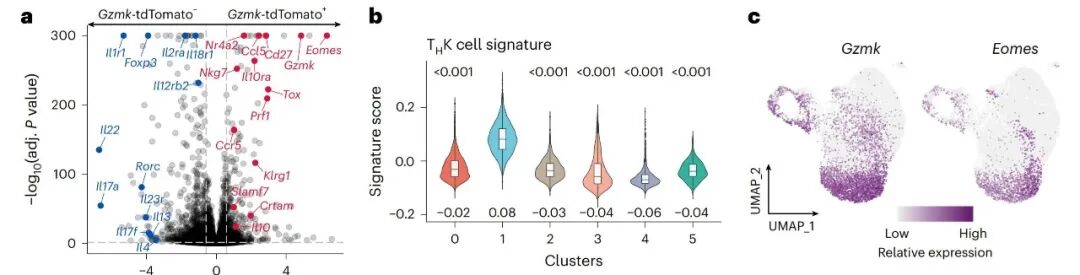
正交验证价值:证明 TʜK 分化不依赖 Th1/Th2/Th17 经典路径,这是界定新 Subset 的一票否决权环节——发育起源独立性验证是正交验证链中最根本的层级。
范式要点:共转移体内竞争实验在同一只受体小鼠内创造野生型 vs 基因敲除的完美内部对照,排除微环境差异干扰;关键是敲除经典路径的发育因子而非效应分子。
第四步:主控转录因子正交验证——充分性、必要性与直接靶向的三重锁定
核心科学问题:驱动 TʜK 细胞身份的主控转录因子是什么?它是否兼具充分性与必要性?
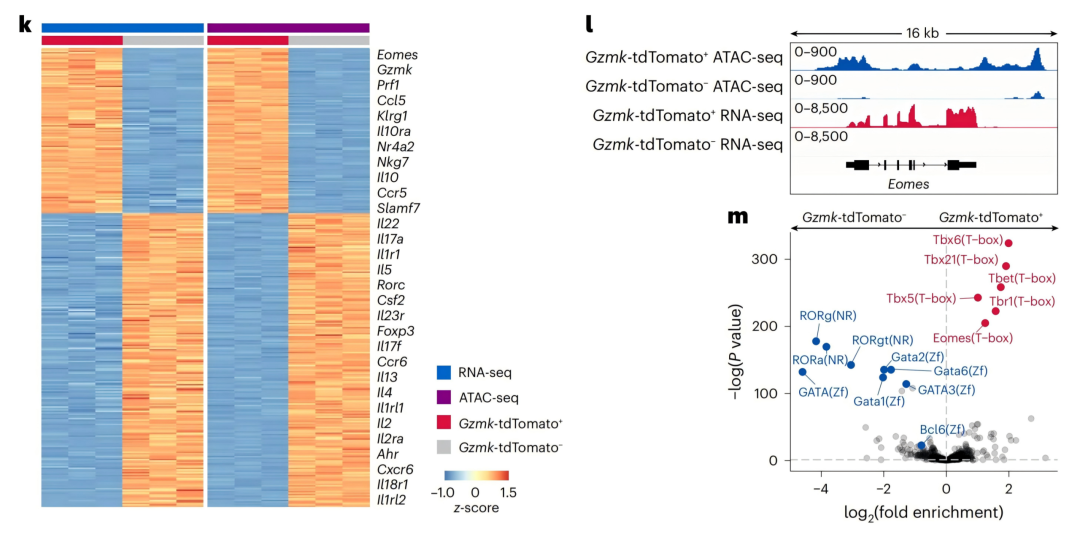
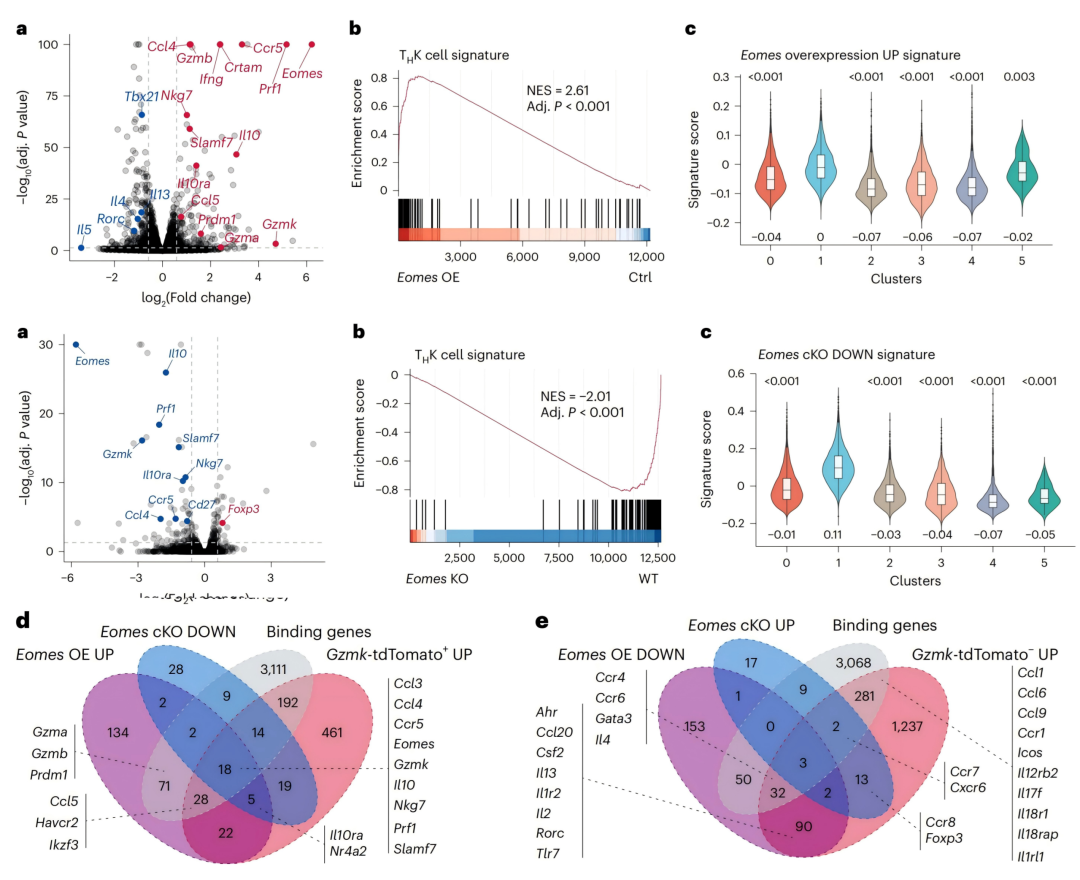
研究方法与发现:整合 scRNA-seq 与 bulk RNA-seq 发现 Eomes 是 TʜK 细胞的谱系决定性主控转录因子(Master Regulator)。研究团队以充分性—必要性—直接靶向三方面实验构成界定 EOMES 为主控转录因子的证据链:
- 充分性——流式证实 EOMES 过表达可特异性激活 TʜK 核心基因程序(包括 Gzmk 与 Prf1),同时广谱抑制经典 T 细胞谱系分化程序;
- 必要性——体内 T 细胞特异性敲除 Eomes 完全阻断 TʜK 细胞分化并显著减弱肠道免疫病理损伤,而单独敲除 Gzmk 不足以减轻肠道炎症,证明病理依赖 EOMES 主控的整体转录网络而非单一 GZMK 分子;
- 直接靶向——CUT&Tag 证实 EOMES 蛋白直接结合在 Gzmk 与 Prf1 基因位点的调控区域。
进一步以四维交叉验证锁定 18 个 EOMES 核心靶基因。上游调控方面,BCL6 正向调控 EOMES 表达;时序实验显示 TʜK 细胞的诱导生成时序晚于 Th1/Th17。综合 EOMES 必要且充分、直接驱动 Gzmk 等效应分子的证据,可将 EOMES 判定为 TʜK 细胞的谱系决定性主控转录因子。
正交验证价值:超越简单相关性研究,将这群细胞表达了什么升华为是什么驱动了它的身份。
范式要点:构建 Subset 主控转录因子的充分性—必要性—直接靶向严谨证据链;四维交叉验证(Gzmk⁺ vs Gzmk⁻ 上调基因 ∩ Eomes 过表达诱导基因 ∩ Eomes cKO 下调基因 ∩ EOMES CUT&Tag 结合基因)是锁定核心调控网络的黄金分析策略。
第五步:表观遗传锁定验证——从染色质层面确立身份的不可逆性
核心科学问题:TʜK 细胞的独特身份是否在表观遗传层面被锁定?
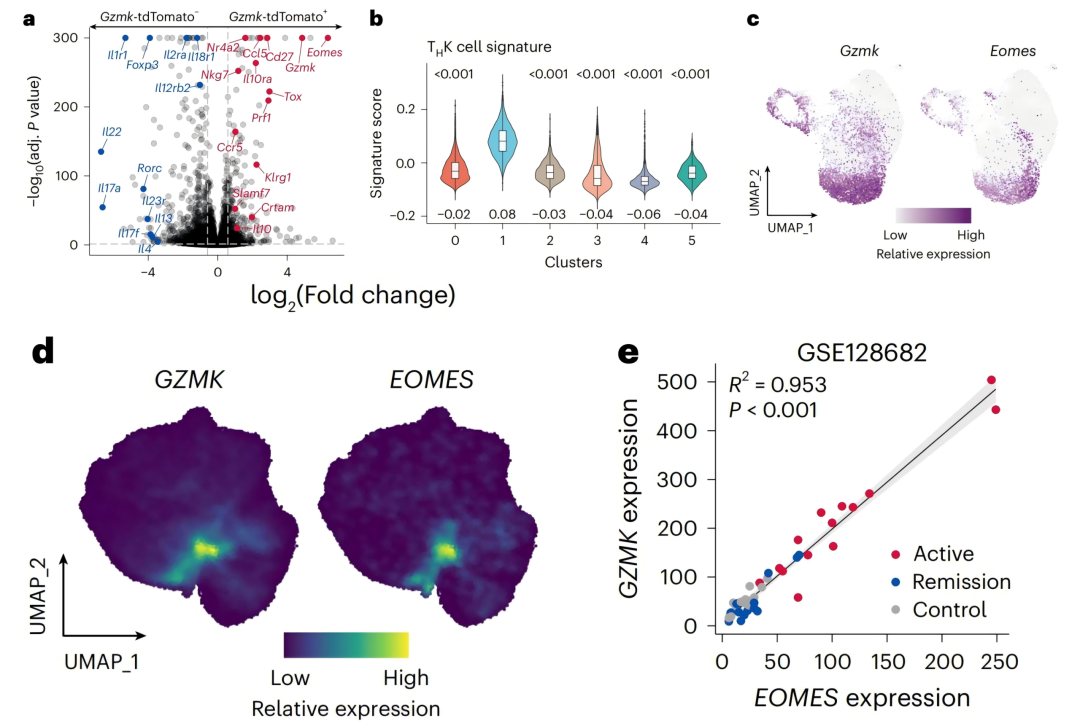
研究方法与发现:通过 RNA-seq、ATAC-seq、CUT&Tag 与 ChIP-seq 的整合分析证实,TʜK 细胞拥有区别于经典 CD4⁺ T 细胞的独特染色质开放图谱:Eomes、Gzmk、Prf1 等标志基因调控区域在 TʜK 细胞中高度开放,Rorc、Il17a、Il5 等替代谱系基因区域在非 TʜK 细胞中更开放;T-box 基序在 TʜK 细胞高可及区域显著富集,RORγ/RORα、Bcl6 与 GATA 基序在低可及区域富集。
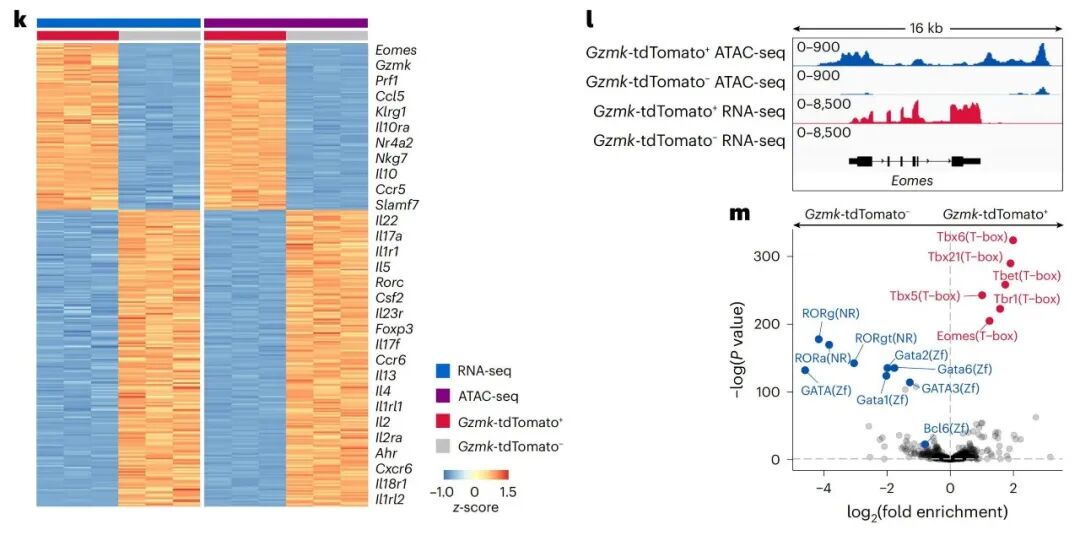
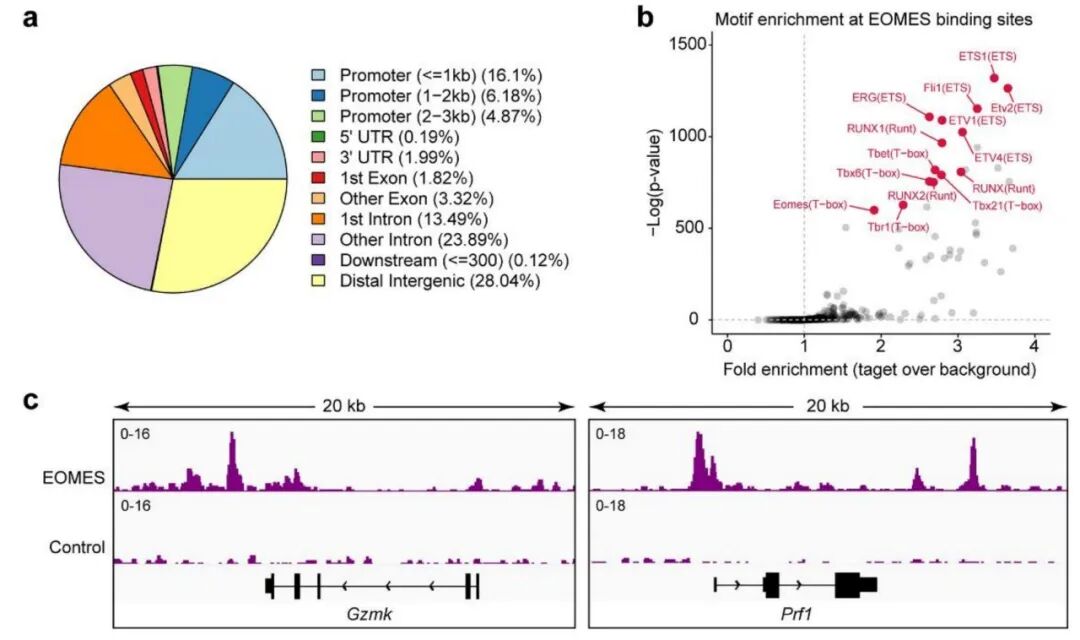
正交验证价值:在转录、蛋白、表观、直接结合四个层面确立 EOMES 作为 TʜK 细胞谱系决定性主控转录因子的地位,是确立身份不可逆性的关键环节。
范式要点:表观遗传锁定(Epigenetic Locking)是区分 Subset 与 State 的核心判据——当 Cluster 的特异性开放区域富集谱系决定性转录因子的结合基序、且替代谱系调控区域处于关闭状态时,它便获得了独立身份的不可逆分子基础。
第六步:功能非冗余性验证——体内模型的终极功能确证
核心科学问题:TʜK 细胞在肠道炎症中是否发挥着不可替代的致病功能?
研究方法与发现:将 Eomes cKO 与 Gzmk⁻/⁻ naive CD4⁺ T 细胞过继转移至 Rag1⁻/⁻ 受体诱导结肠炎。Eomes cKO 受体小鼠结肠炎显著减轻(体重下降减少、结肠缩短减轻、组织学评分降低);流式证实 Eomes 敲除几乎完全清除 LP 与 mLN 中的 Gzmk⁺ TʜK 细胞、Perforin 与 GZMB 阳性细胞比例显著降低,并使 CD4⁺ T 细胞向 Th17/Treg 谱系偏移;而 Gzmk 单独敲除不影响结肠炎严重程度。
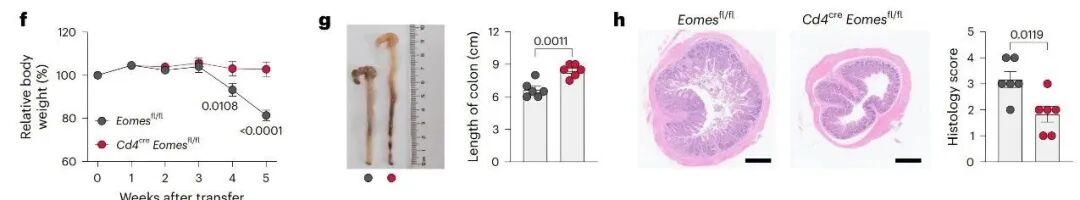
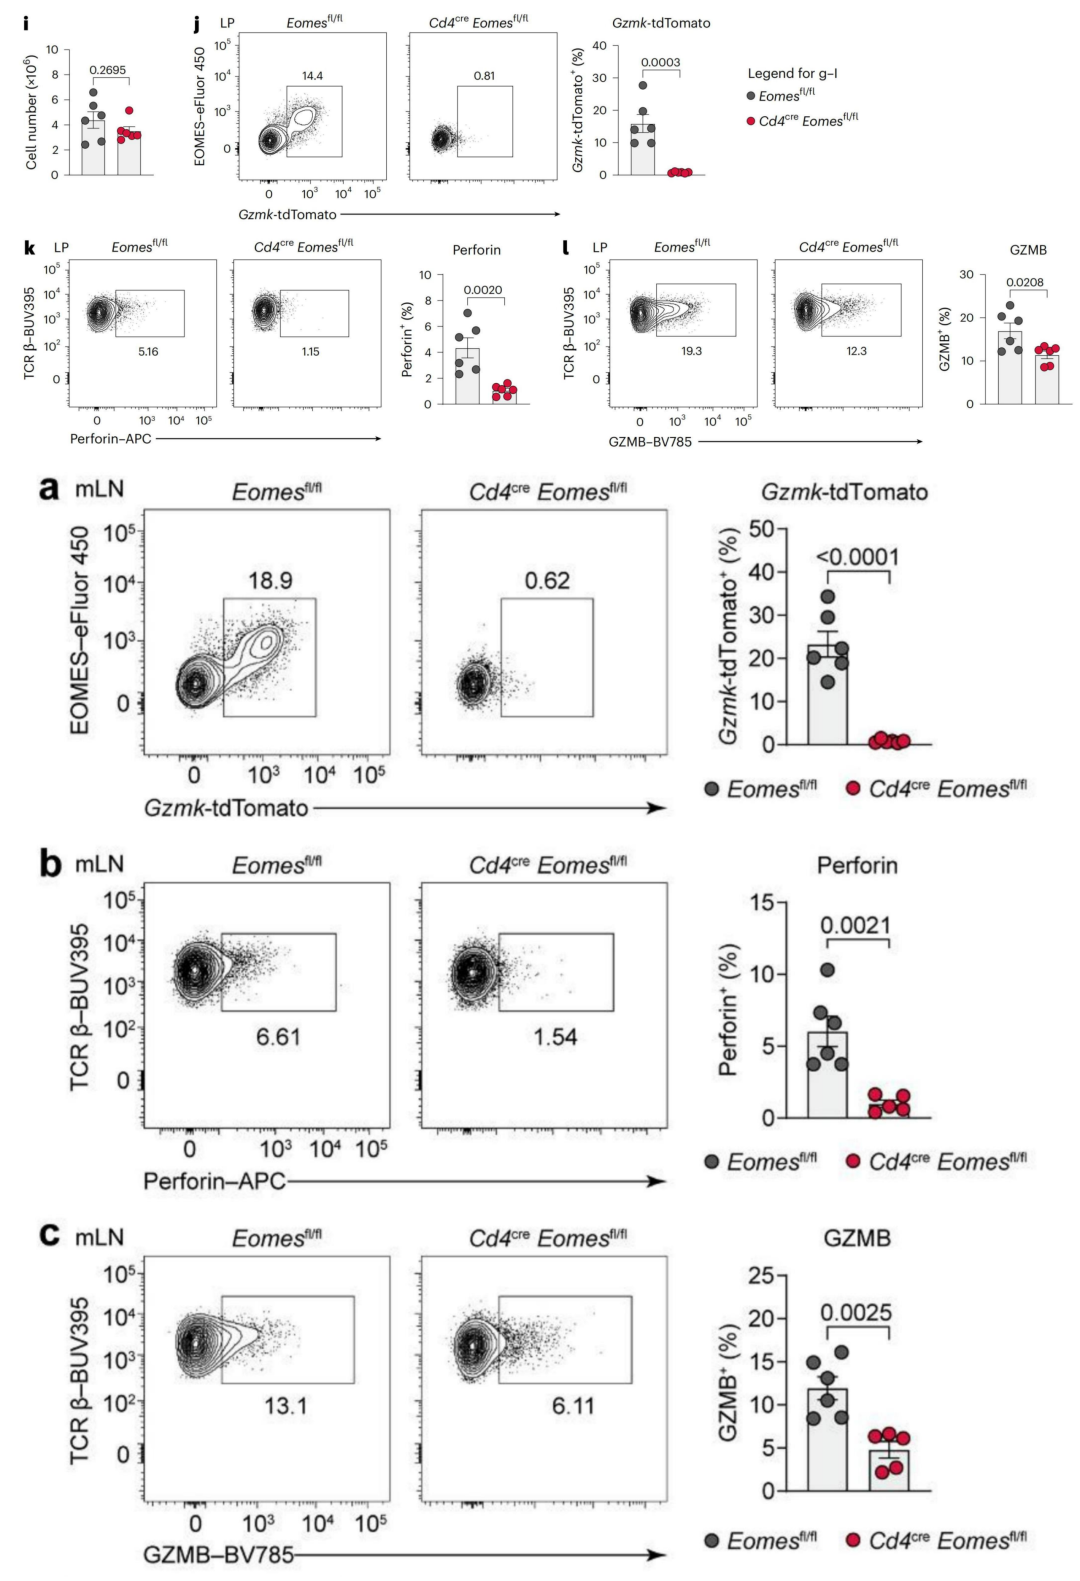
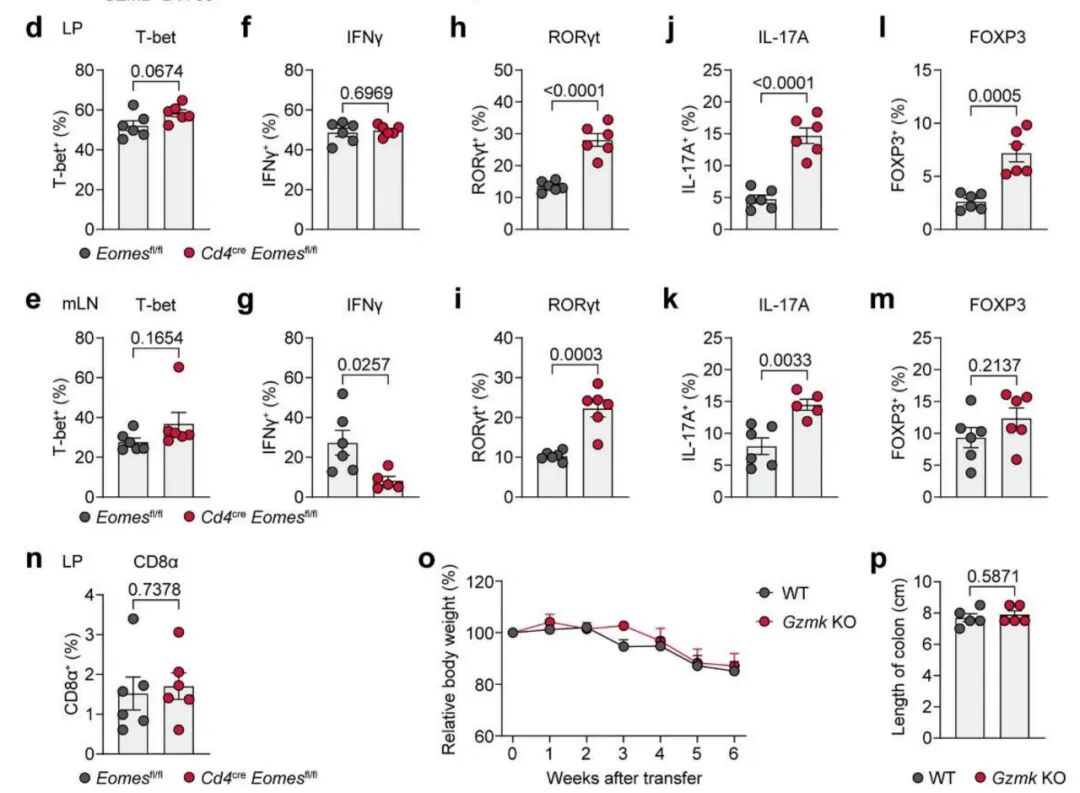
正交验证价值:完成新 Subset 功能非冗余性的体内终极验证,将基因型、细胞命运与疾病表型串联为完整因果链条。
范式要点:主控转录因子条件性敲除同时导致细胞消失与疾病减轻,是证明功能非冗余性的最直接策略;靶向主控转录因子可能比抑制单一效应分子更具治疗潜力。
第七步:跨物种普适性验证——排除模型依赖与物种限制
核心科学问题:TʜK 细胞是人类疾病中的保守亚群还是模型特例?
研究方法与发现:将小鼠 TʜK 特征基因的人同源基因在人类 IBD 与泛癌 scRNA-seq 数据中交叠分析,并在小鼠肿瘤(Hepa1-6)、EAE、LCMV cl13 慢性感染模型中验证。结果显示,人和小鼠核心基因(EOMES、GZMK、CCR5、PRF1、NKG7、SLAMF7)在多个数据集中一致上调;Eomes、Gzmk、Prf1 是全部四个疾病模型中唯一一致且显著上调的基因。
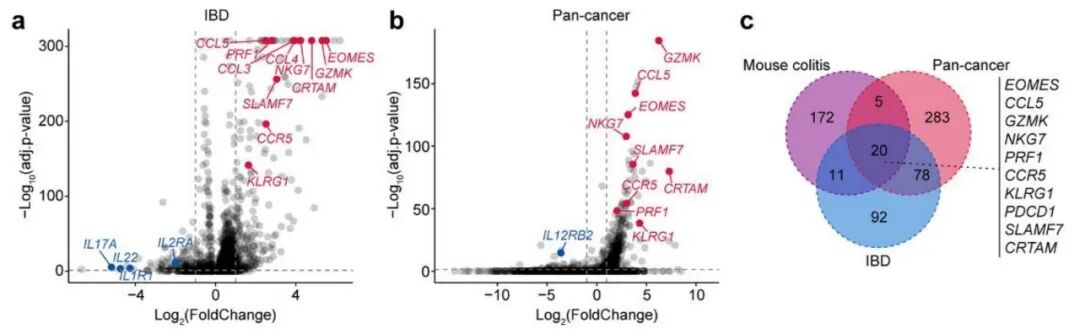
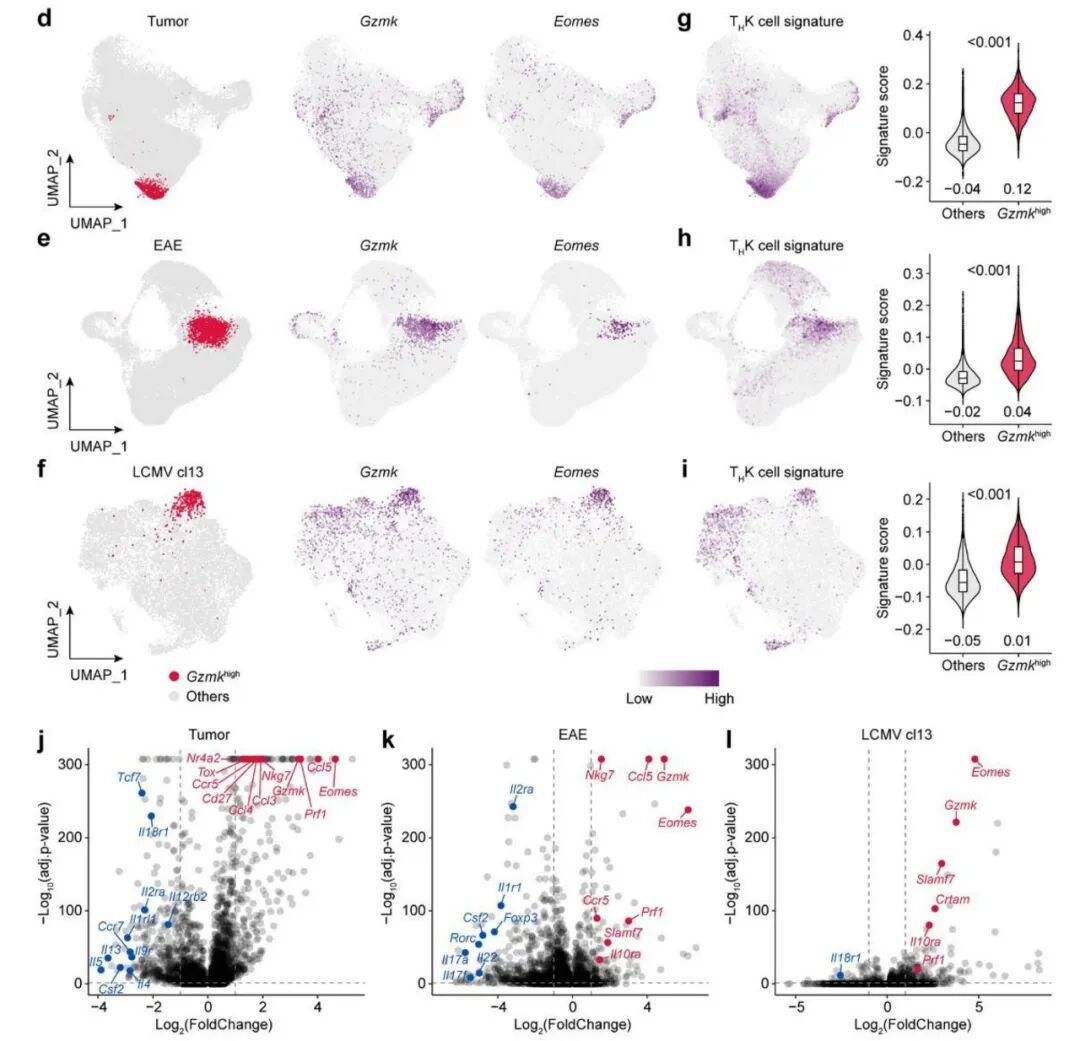
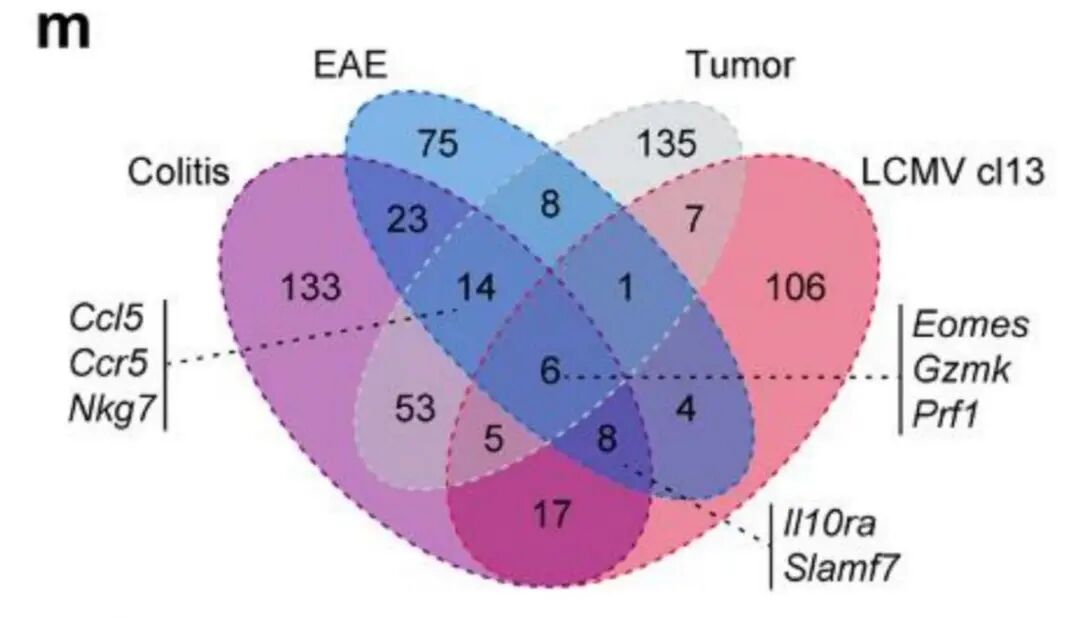
正交验证价值:完成跨物种、跨疾病的最终确认——一个真正的新免疫细胞亚群应在进化上保守、在多种病理条件下发挥功能;人鼠保守性意味着小鼠模型中的功能发现具有向人类疾病推进的可行性。
范式要点:多疾病模型的交叠验证是排除模型依赖性的最终步骤;在所有模型中一致上调的核心基因模块,构成该亚群的身份内核。
三、研究范式的方法论总结
董晨院士团队的研究路径——从 Cluster 到 Subset、从生信发现到功能确认——提供了免疫学领域最完整的 Subset 界定范例。
表2:从 Cluster 到 Subset 的七步验证闭环速查表
| 验证步骤 | 核心科学问题 | 正交验证方法 | 关键验证标准 |
|---|---|---|---|
| Step 1 无偏倚发现 | 该 Cluster 是未被定义的新 Subset 还是已知亚群的 State? | scRNA-seq 数据整合分析;以非经典身份为线索 | 跨物种、跨疾病鉴定且 DEGs 特征一致 |
| Step 2 蛋白水平验证 | 转录组定义的 Cluster 在蛋白层面真实存在吗? | 报告基因小鼠 + 多参数流式(谱系 TF + 效应分子检测) | 蛋白水平重现 DEGs 特征 |
| Step 3 发育起源验证 | 分化是否依赖已知谱系通路? | 共转移体内竞争实验(KO+WT 同受体);谱系决定性主控转录因子敲除 | 独立于所有已知谱系通路 |
| Step 4 主控转录因子验证 | 谁驱动了它的身份?是否兼具充分性与必要性? | 充分性(过表达)+ 必要性(cKO)+ 直接靶向(CUT&Tag)+ 四维交叉验证 | 充分性+必要性+直接靶向均成立 |
| Step 5 表观遗传验证 | 其身份是否有不可逆的分子基础? | ATAC-seq + 基序富集分析 + CUT&Tag/ChIP-seq | 谱系决定性 TF 基序富集于开放区域,替代谱系区域关闭 |
| Step 6 功能非冗余性验证 | 它是否承担不可替代的生物学功能? | 条件性敲除 + 过继转移疾病模型 + 流式功能验证 | 主控转录因子敲除→细胞消失→疾病减轻 |
| Step 7 跨物种普适性验证 | 它是模型特例还是普遍规律? | 人类多疾病队列 scRNA-seq + 多疾病动物模型验证 | 核心 DEGs 跨平台、跨物种一致 |
使用说明:Step 1–2 为必要条件,Step 3–5 为界定性条件,Step 6–7 为价值加成条件。三步界定性条件(发育起源独立性 + 主控转录因子铁三角验证 + 表观遗传锁定)是赋予新 Subset身份不可缺失的核心支柱。
本篇文献的科学严谨性,在于每一项实验技术都精准服务于一个明确的科学问题:
- 共转移体系(KO+WT 同时转入)在同一受体体内环境中创造严格内部对照;
- 过表达与条件性敲除双向验证构成主控转录因子验证不可偏废的两翼;
- CUT&Tag将相关性升级为因果关系;
- 多疾病模型交叉验证排除模型特异性假象。
发育起源独立性、主控转录因子的充分性—必要性—直接靶向、功能非冗余性、表观遗传锁定——这些维度构成层级递进的证据链,每一步回答一个不可回避的生物学问题,缺失任何一环都会动摇新 Subset 论断的根基。
四、结语
单细胞组学的核心价值,不在于发现了多少个 Cluster,而在于能将多少个 Cluster 严谨地界定为具有机制意义的生物学发现。TʜK 细胞的发现与验证,提供了一套可复用的多组学多模态正交验证范式——从生信发现到蛋白确证,从发育溯源到主控转录因子锁定,从表观遗传锁定到体内功能确证。正是层层递进的系统性正交验证,而非数据的简单堆砌,赋予了新 Subset 论断不可辩驳的逻辑力量。
南宁维尔凯生物致力于在单细胞分辨率下、从蛋白质层面解析细胞功能异质性,为多组学发现提供单细胞分辨率的蛋白质水平确证,助您将每一个有潜力的 Cluster 转化为经得起推敲的免疫学发现。
参考文献
[1] Xie T, Du Y, Wang Q, et al. A unique CD4⁺ T cell subset expressing granzyme K is regulated by transcription factor EOMES and important for T cell-mediated intestinal inflammation. Nat Immunol. 2026. doi: 10.1038/s41590-026-02479-6.
图表说明:本文插图均引自 Xie et al. 2026(Nature Immunology,DOI: 10.1038/s41590-026-02479-6)原文公开图表,仅作学术解读用途,图表版权归原刊所有。
如需获取定制化高维流式技术服务方案,欢迎联系维尔凯技术团队。
本文由维尔凯公司综合项目实践,对权威文献进行解读,由人工审核 · AI 辅助润色和排版