摘要:2027 年国自然基金申报在即,多数课题组已具备巨噬细胞细胞凋亡、细胞焦亡、坏死性凋亡或铁死亡的群体水平研究基础,但如何突破创新瓶颈?在群体水平研究基础上,运用高维流式进行单细胞分辨率蛋白质水平的功能终态检测,解析巨噬细胞死亡异质性,是重要的"基础研究+创新点"核心策略。本系列由总领框架(本篇)+ 范式专篇 + 实操专篇三篇构成,依次从研究框架、方法学范式与实践操作三个层面协同展开。
传统 Western blot(WB) 匀浆法掩盖了细胞亚群差异;单细胞转录组(scRNA-seq)检测的是 mRNA,与细胞功能并不完全一致,且易受解离诱导的即刻早期基因(IEGs)干扰。高维流式细胞术通过免细胞分选、直接在靶器官混合细胞池中进行近原生检测,配合活细胞门控(Live Gating) 消除死细胞非特异吸附,在单细胞分辨率下同时共测细胞身份—受体/PRR—启动分子—执行分子。
该策略的核心检测靶点可包括 MLKL-mem、GSDME-NT / GSDMD-NT 活性片段、cleaved caspase-3,以及铁死亡 GPX4 / SLC7A11 标志物 MFI ,可解析同一刺激下细胞死亡命运的分化,并揭示组织驻留巨噬细胞(tissue-resident macrophages, RTMs) 与单核来源巨噬细胞(monocyte-derived macrophages, MDMs) 在复杂病理微环境下细胞死亡敏感性/死亡命运倾向的重塑,是推进"基础研究+创新点"跃升的核心路径之一。
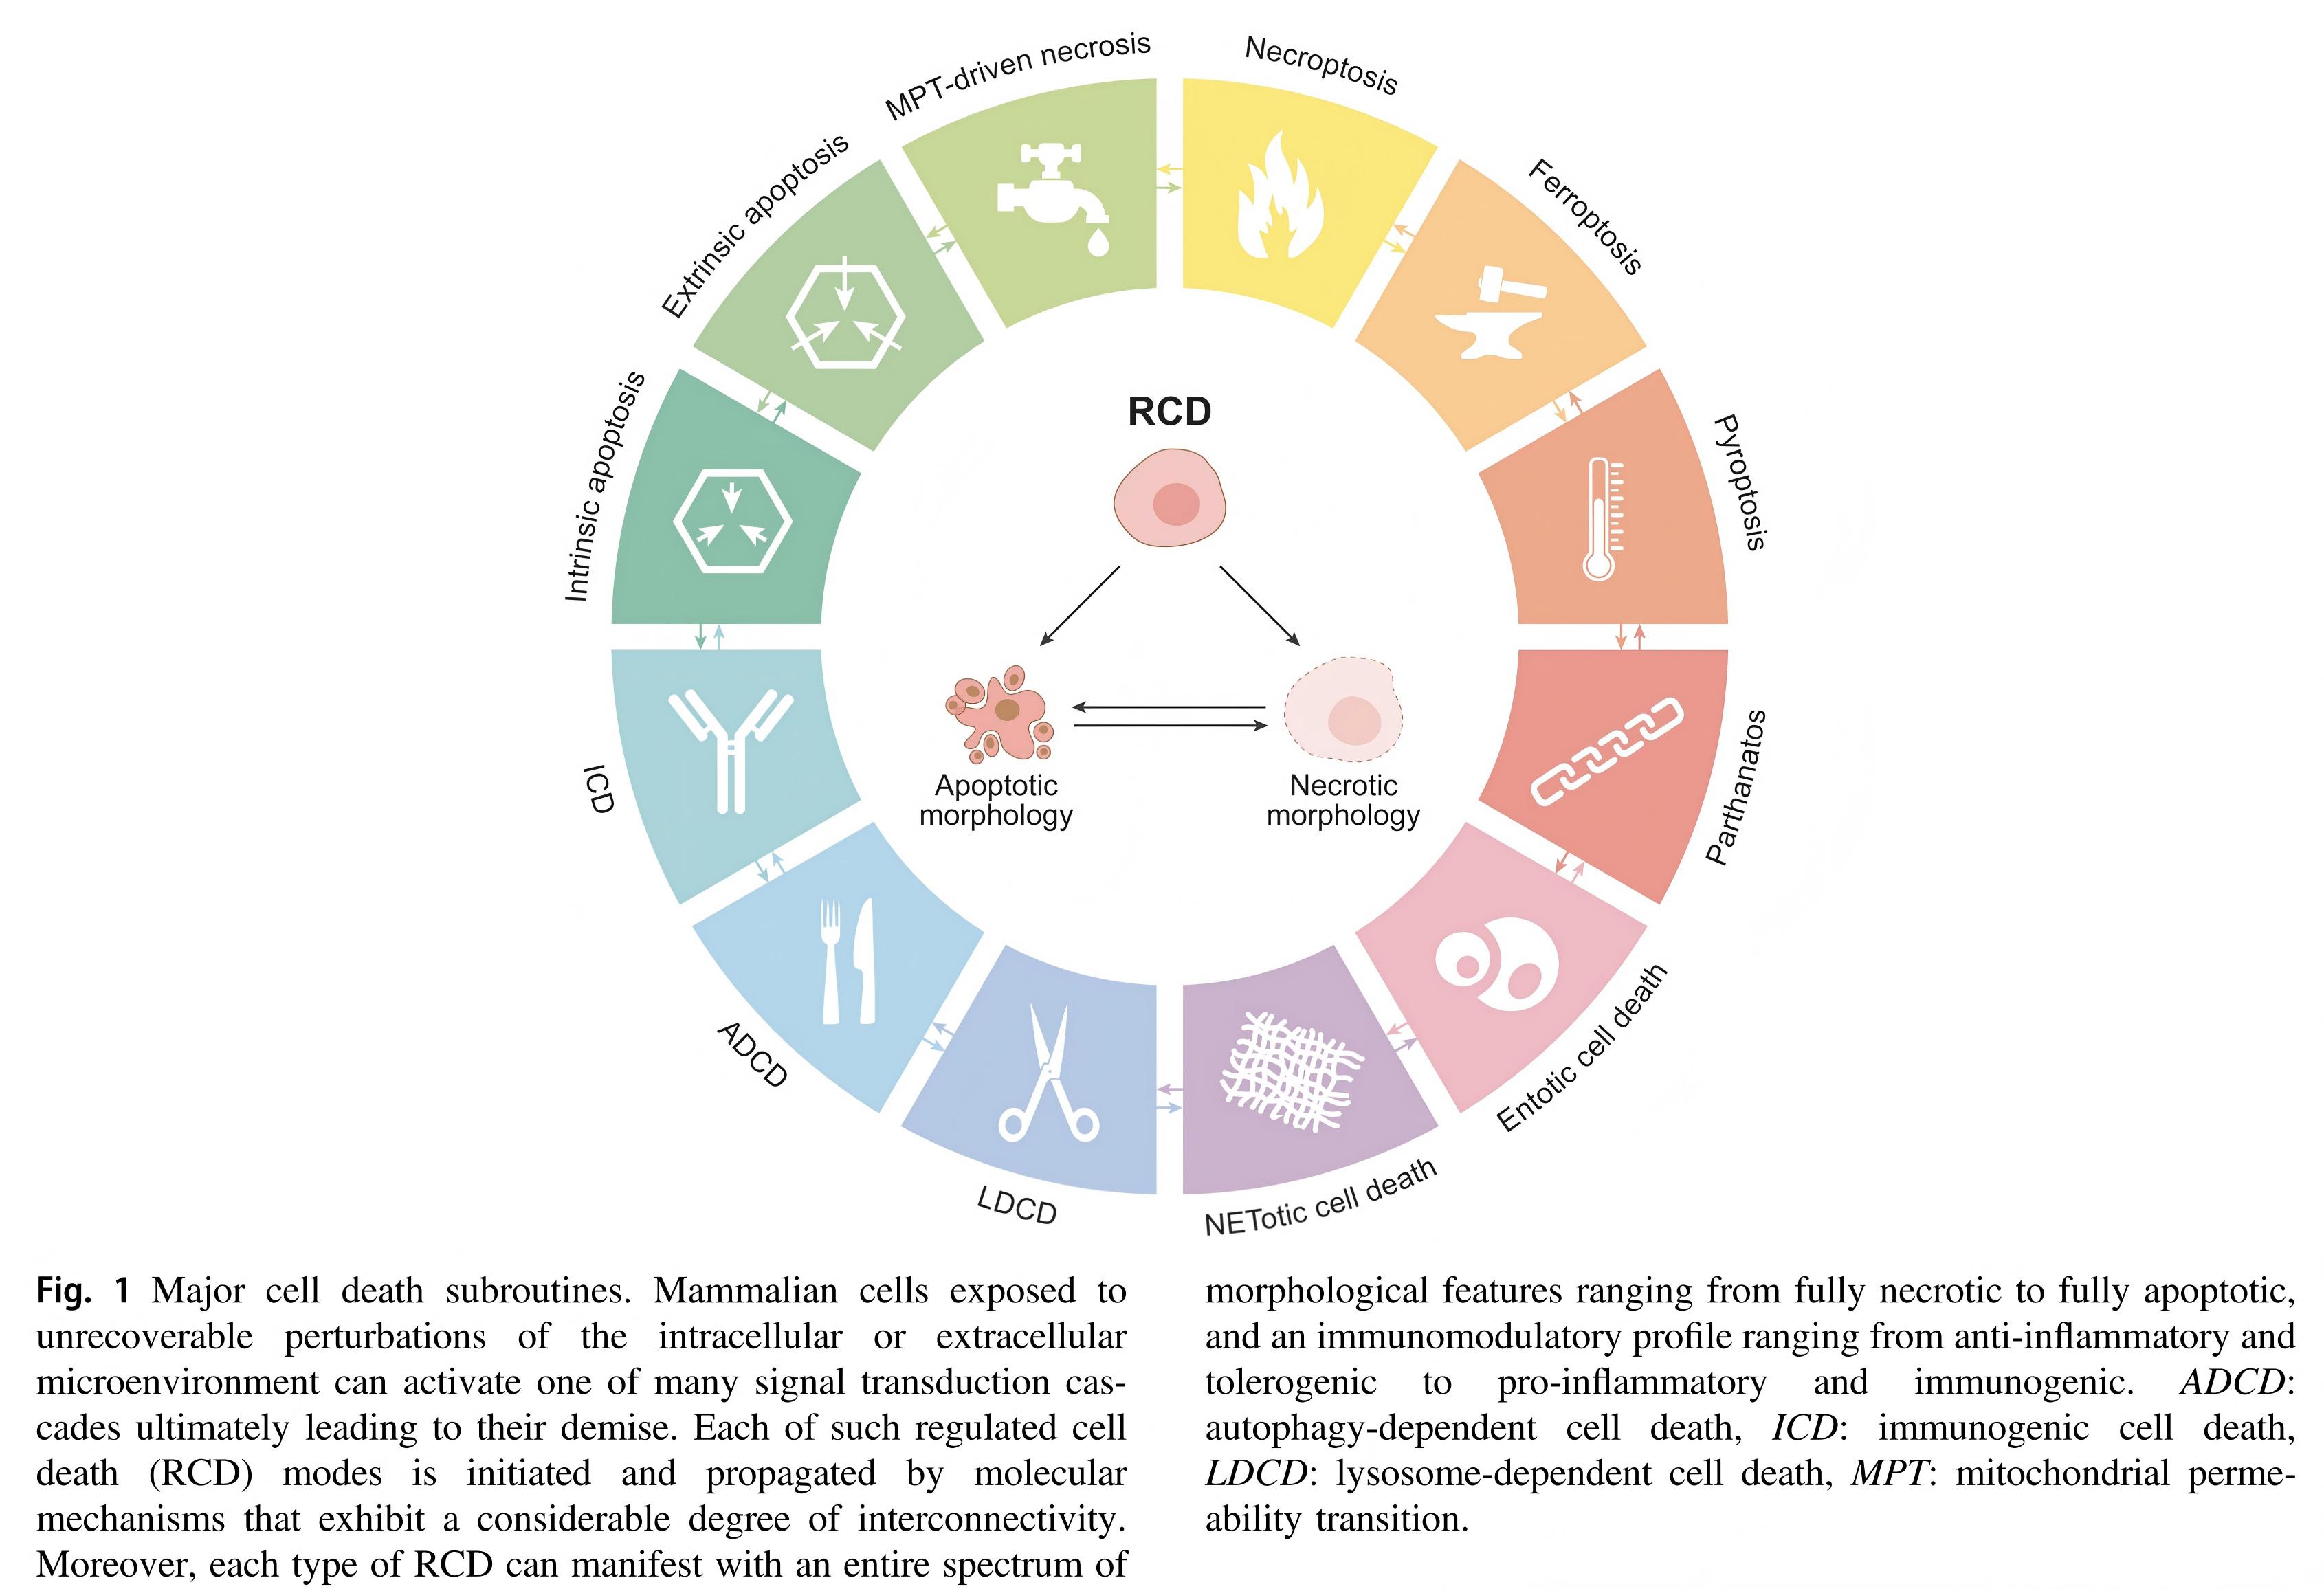
细胞死亡并非单一事件,而是由细胞凋亡、细胞焦亡、坏死性凋亡与铁死亡等多种调节性细胞死亡(RCD)形式构成的全景谱系(图 1),不同死亡形式拥有各自的关键执行分子,这正是巨噬细胞死亡呈现异质性的分类学前提。
许多课题组在前期工作中,已通过 Western blot(WB)、qPCR 或 ELISA 证实了某一疾病模型中巨噬细胞存在细胞凋亡、细胞焦亡、坏死性凋亡或铁死亡。
但在国自然评审中,仅停留在全组织匀浆或混合细胞群体的 WB 蛋白质检测,常被评审专家评价为"机制缺乏创新""未能区分细胞亚群贡献"。
将课题从群体平均水平(Bulk level)推进至单细胞蛋白质水平(Single-cell Protein level),不仅能直接继承课题组既有的前期研究基础,更有望以较强的创新性填补"微环境应激下巨噬细胞死亡异质性"的研究空白。
为什么相同的微环境或刺激,巨噬细胞会走向不同的细胞死亡命运?这一异质性源于两个维度的生物学特征(图 2):
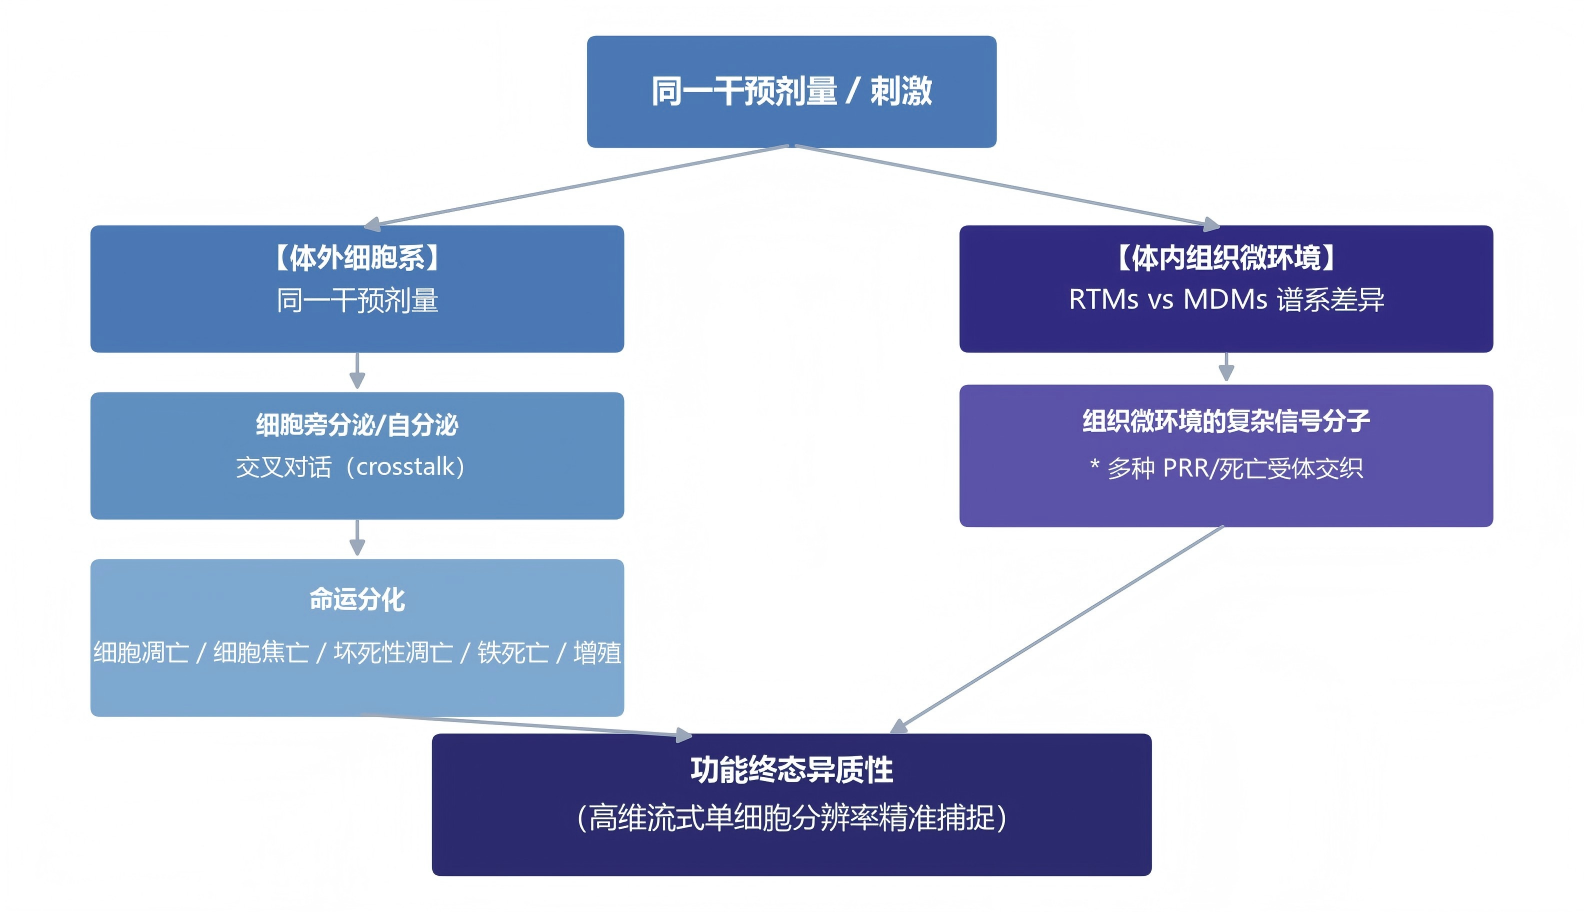
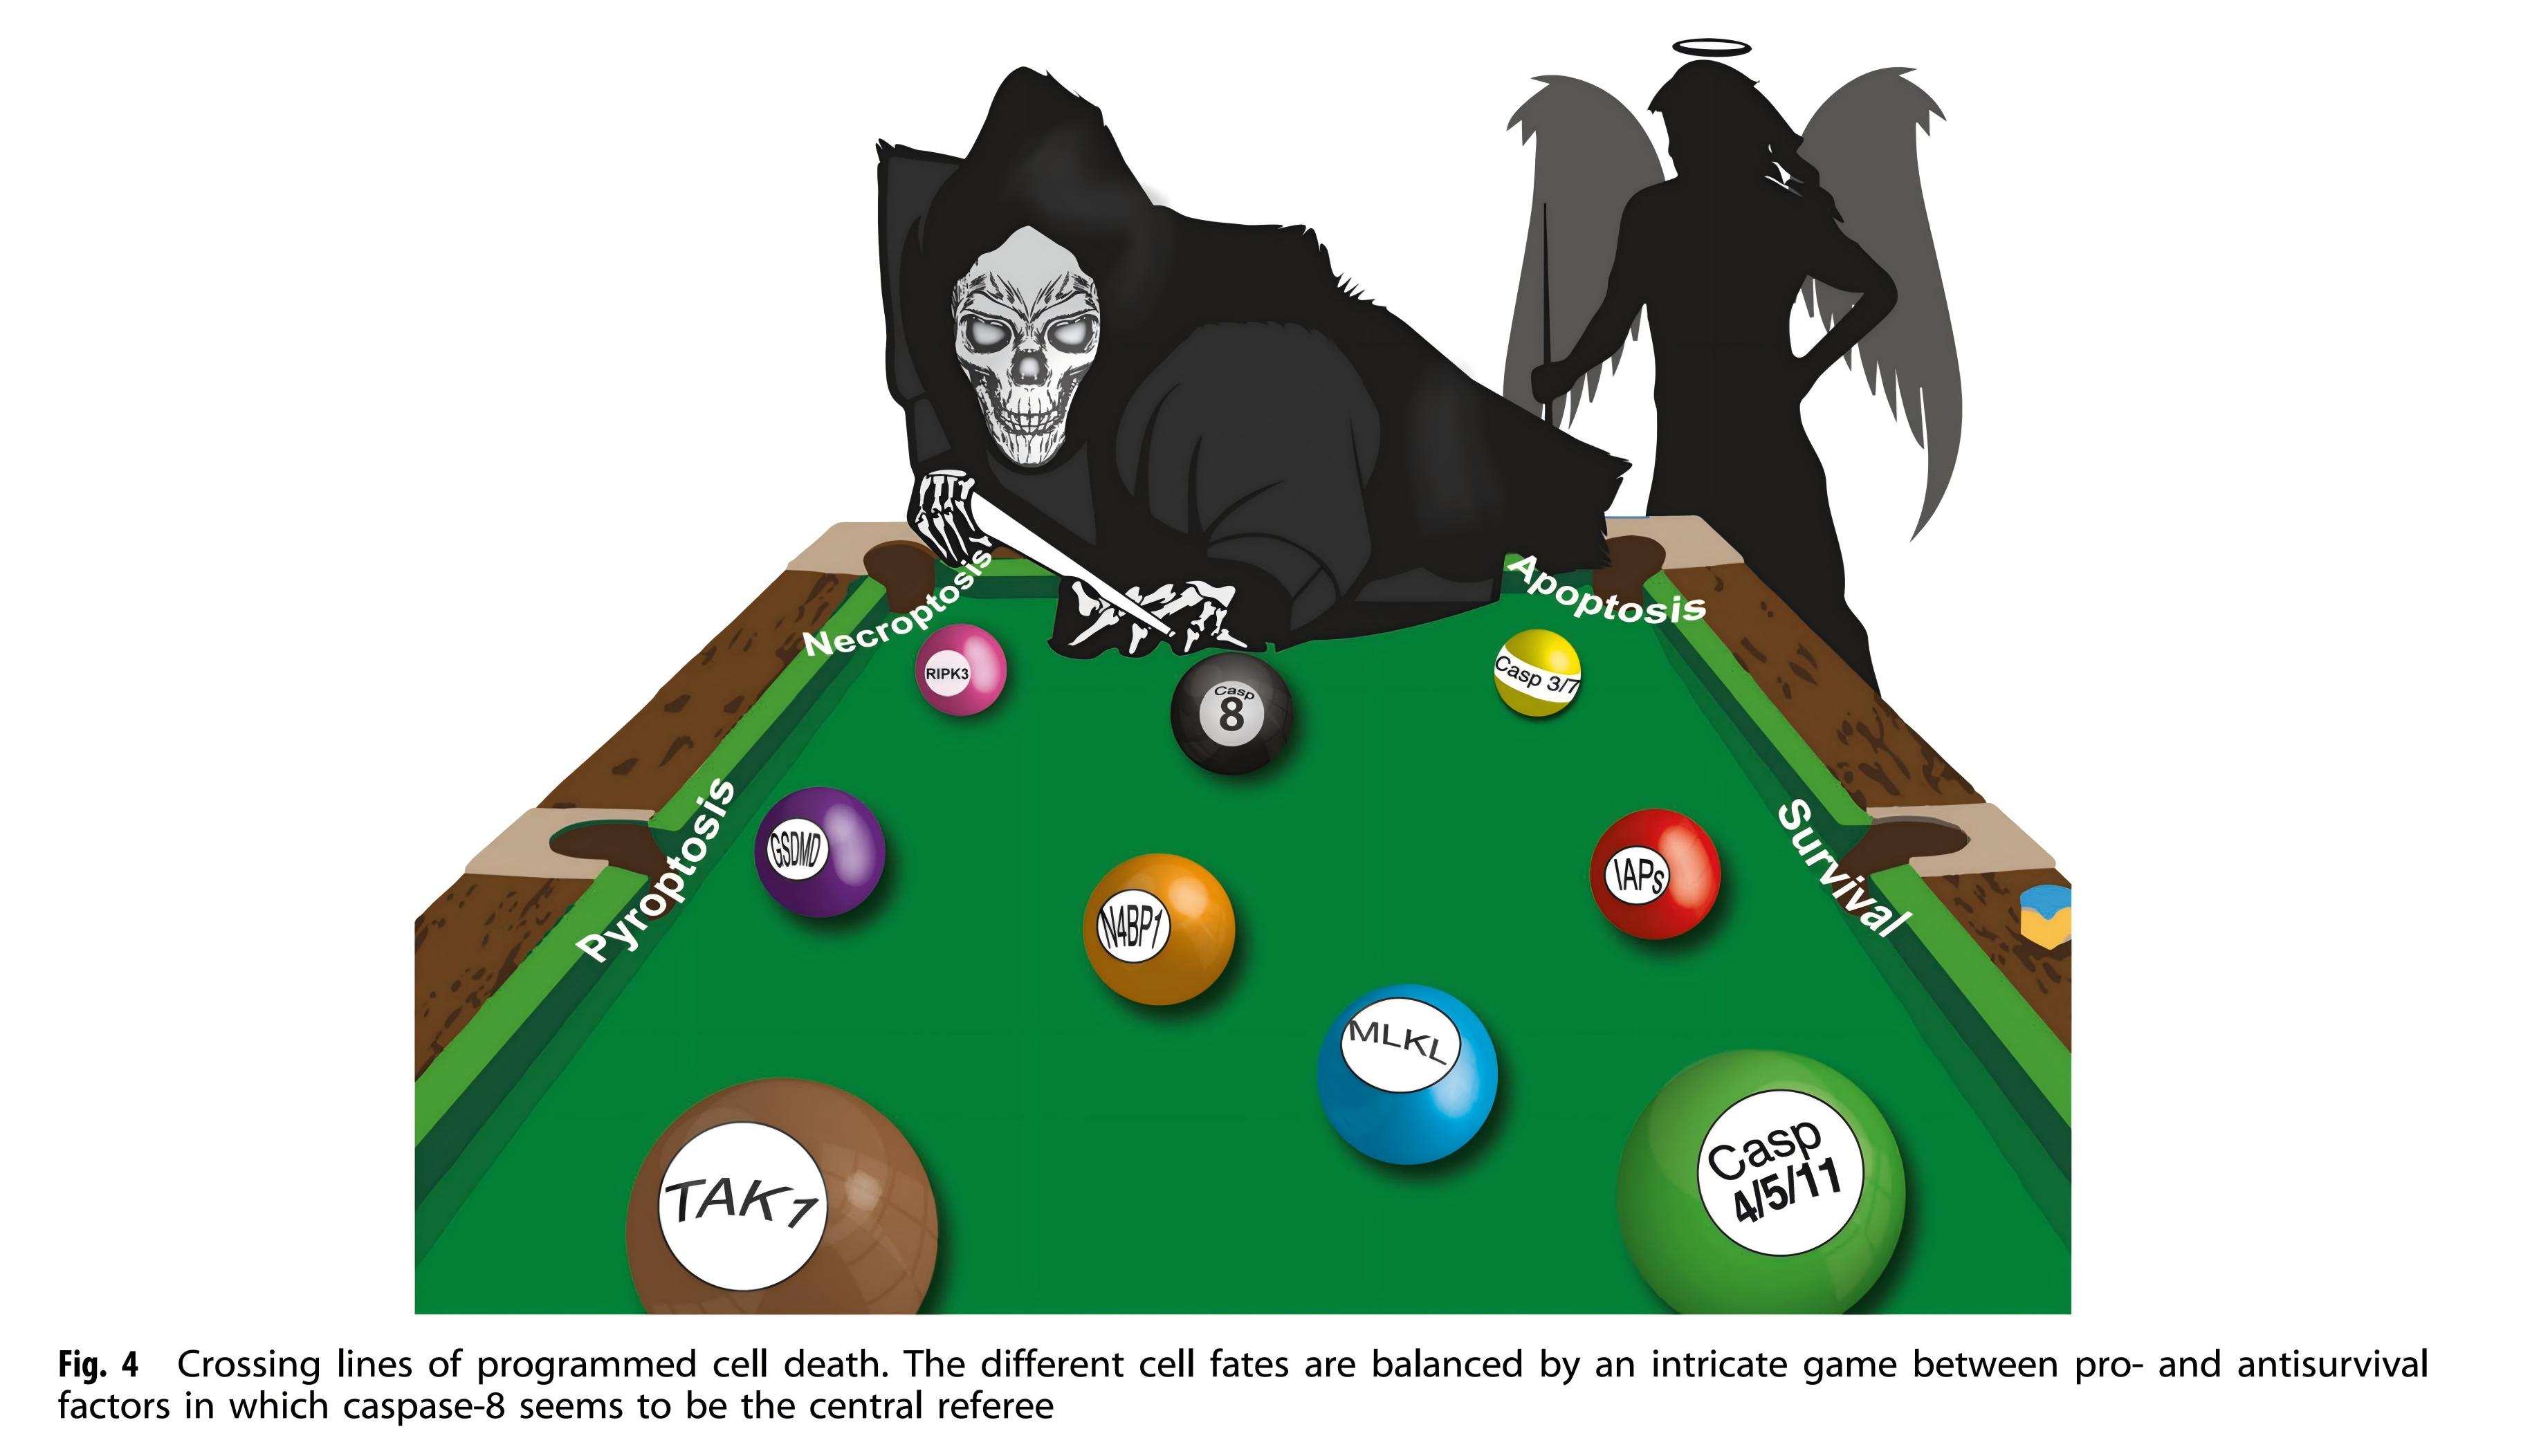
体外细胞系的细胞死亡异质性:即使在遗传背景高度一致的 RAW264.7 细胞系(小鼠巨噬细胞系)中,给予等量的死亡诱导剂(如 TNF-α + IFN-γ,其诱导 PANoptosis 的机制见 Karki 等,Cell 2021 [1]),现有数据仍提示有部分细胞仅呈现 cleaved caspase-3 阳性或 MLKL-mem 阳性。这一现象提示,细胞旁分泌/自分泌的交叉对话(crosstalk),与细胞倾向于抵抗死亡、走向细胞焦亡还是坏死性凋亡相关。这一交叉对话以 caspase-8 为中心裁判——caspase-8 在细胞凋亡、细胞焦亡与坏死性凋亡三条通路之间切换与平衡,决定同一细胞走向哪条死亡程序(图 3)。
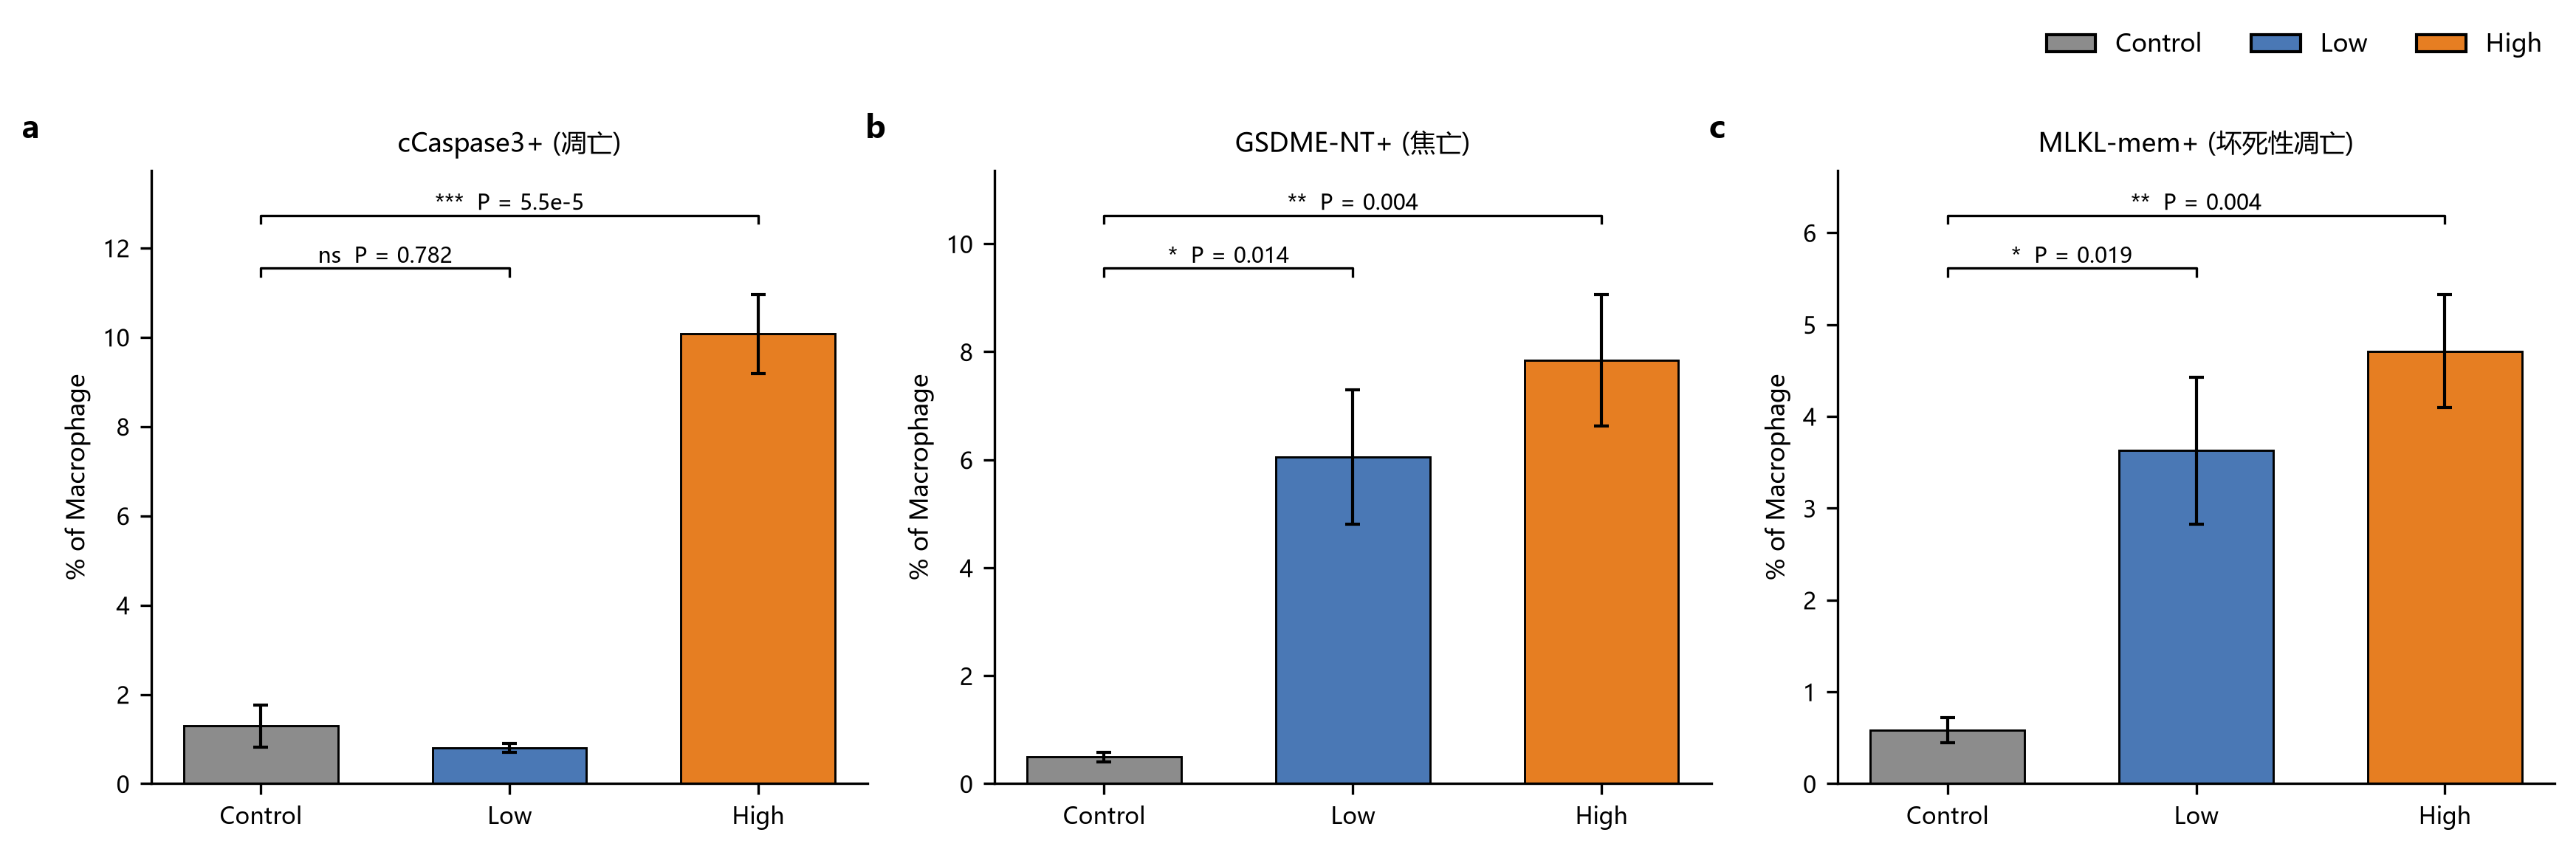
维尔凯在 RAW264.7 细胞系的实测数据进一步量化了这一异质性:以 TNF-α + IFN-γ 联合处理 24 小时后,细胞凋亡(cleaved caspase-3+)、细胞焦亡(GSDME-NT+)与坏死性凋亡(MLKL-mem+)呈剂量依赖的梯度激活——低浓度组主要激活焦亡与坏死性凋亡,高浓度组则三条死亡通路同时升高(图 4)。
体内复杂组织微环境的细胞死亡命运重塑:实体组织中的巨噬细胞并非单一细胞群体,而是由组织驻留巨噬细胞(RTMs) 与单核来源巨噬细胞(MDMs) 组成的动态系统(Epelman 等,Immunity 2014 [10];Ginhoux 等,Science 2010 [11])。稳态下 RTMs 源于胚胎或单核细胞,疾病期则由血液单核细胞募集并分化为疾病相关 MDMs(mo-macs)(图 5)。
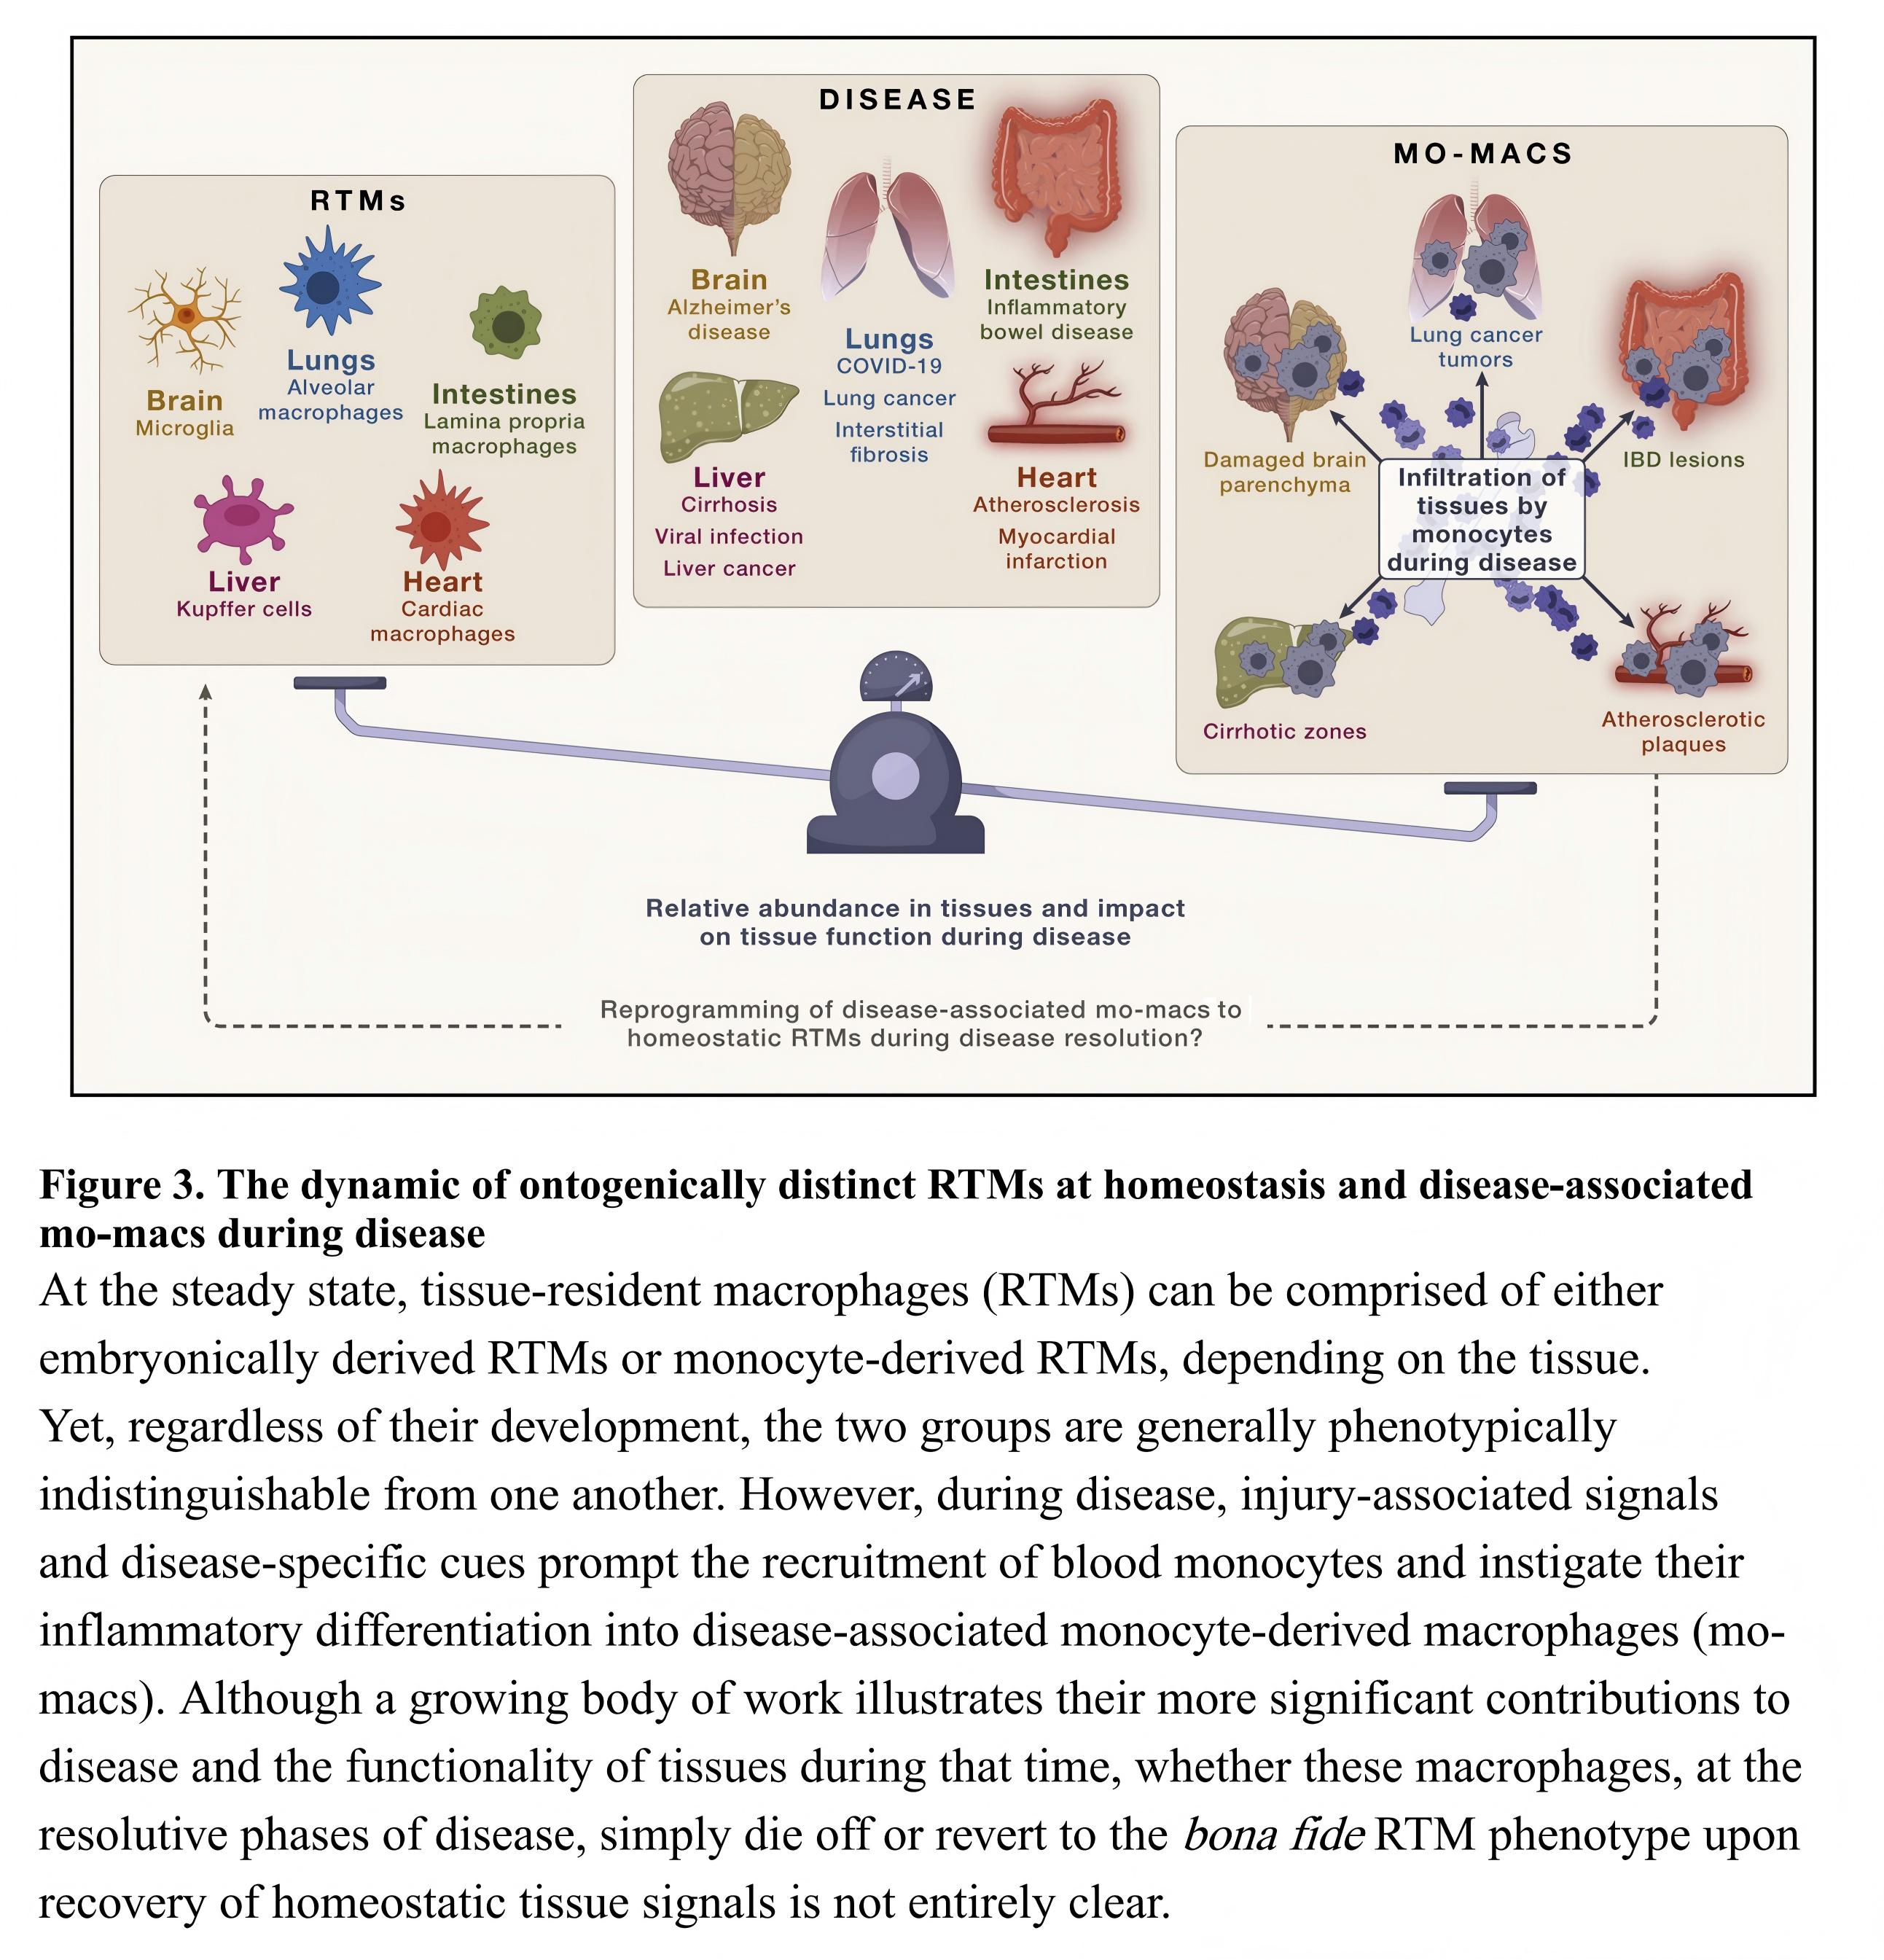
RTMs 与 MDMs 表达着明显不同的模式识别受体(PRRs,如 TLRs、NLRs)和死亡信号受体(TNFR1、Fas)。在病原相关分子模式(PAMPs)、损伤相关分子模式(DAMPs)及炎性因子交织的微环境中,两者接收与整合信号的能力存在显著差异。
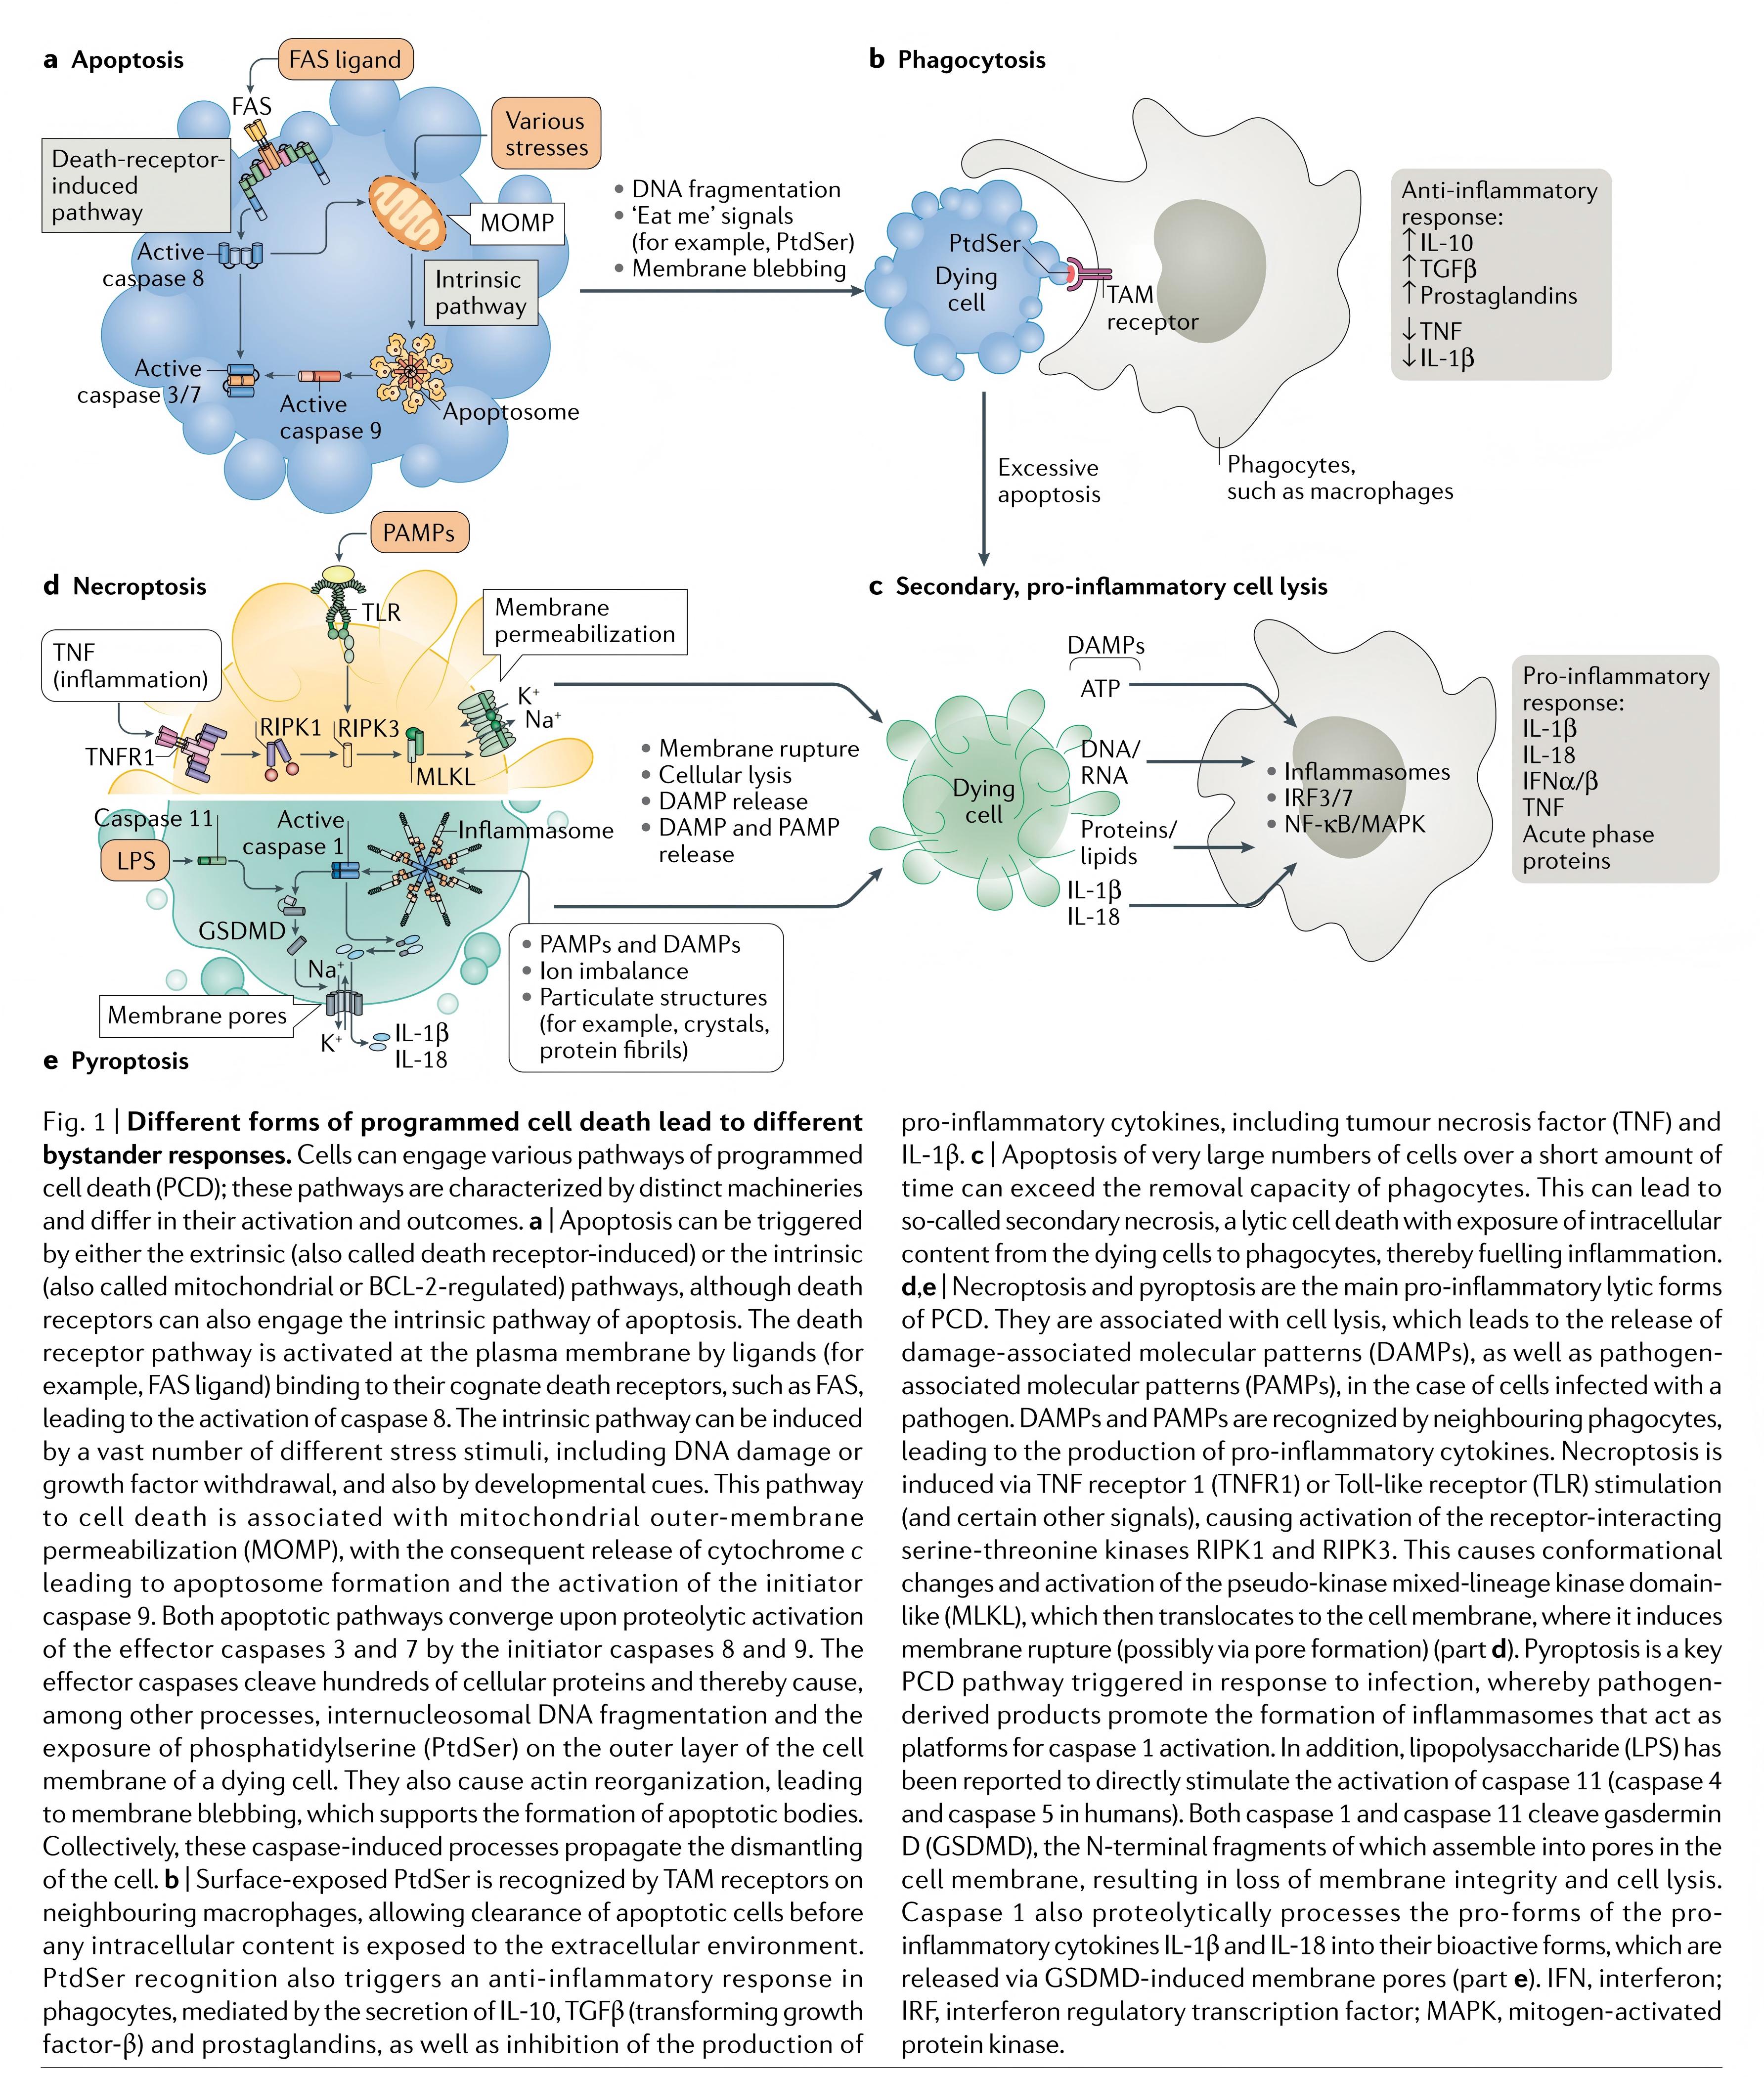
结论:要回答"在疾病进展或损伤修复中,究竟是哪个巨噬细胞亚群、在何种信号调控下、走向何种死亡途径",单细胞分辨率是更直接的技术路径,这也是传统 WB 匀浆法难以实现的分析维度。值得注意的是,死亡方式不仅决定细胞自身命运,更通过旁观者反应重塑组织炎症结局——细胞凋亡经胞葬作用被非炎性清除,而坏死性凋亡与细胞焦亡则经 MLKL-mem / GSDMD 打孔释放 DAMP/PAMP 促发炎症(图 6),这使巨噬细胞死亡异质性具备实质的病理学意义。
(注:上述机制证据多来自小鼠模型与细胞系,外推至人类组织时需结合人源样本验证。)
在实体组织样本中单细胞水平研究细胞亚群的细胞死亡,主要技术挑战在于"如何避免组织解离过程改变细胞真实的死亡状态"。高维流式细胞术展现出独特的近原生解析优势:
高维流式选择的检测靶点为具有不可逆结构改变的关键效应蛋白(如 MLKL-mem、GSDME-NT / GSDMD-NT 活性片段、cleaved caspase-3),非 IEGs 且非瞬态磷酸化。因此,组织解离过程对细胞死亡状态的干扰较小,更能反映体内真实的原生细胞死亡状态。
高维流式细胞术的核心价值在于,它直接检测单细胞水平的关键效应分子(Key Executioners),即死亡的功能终态:
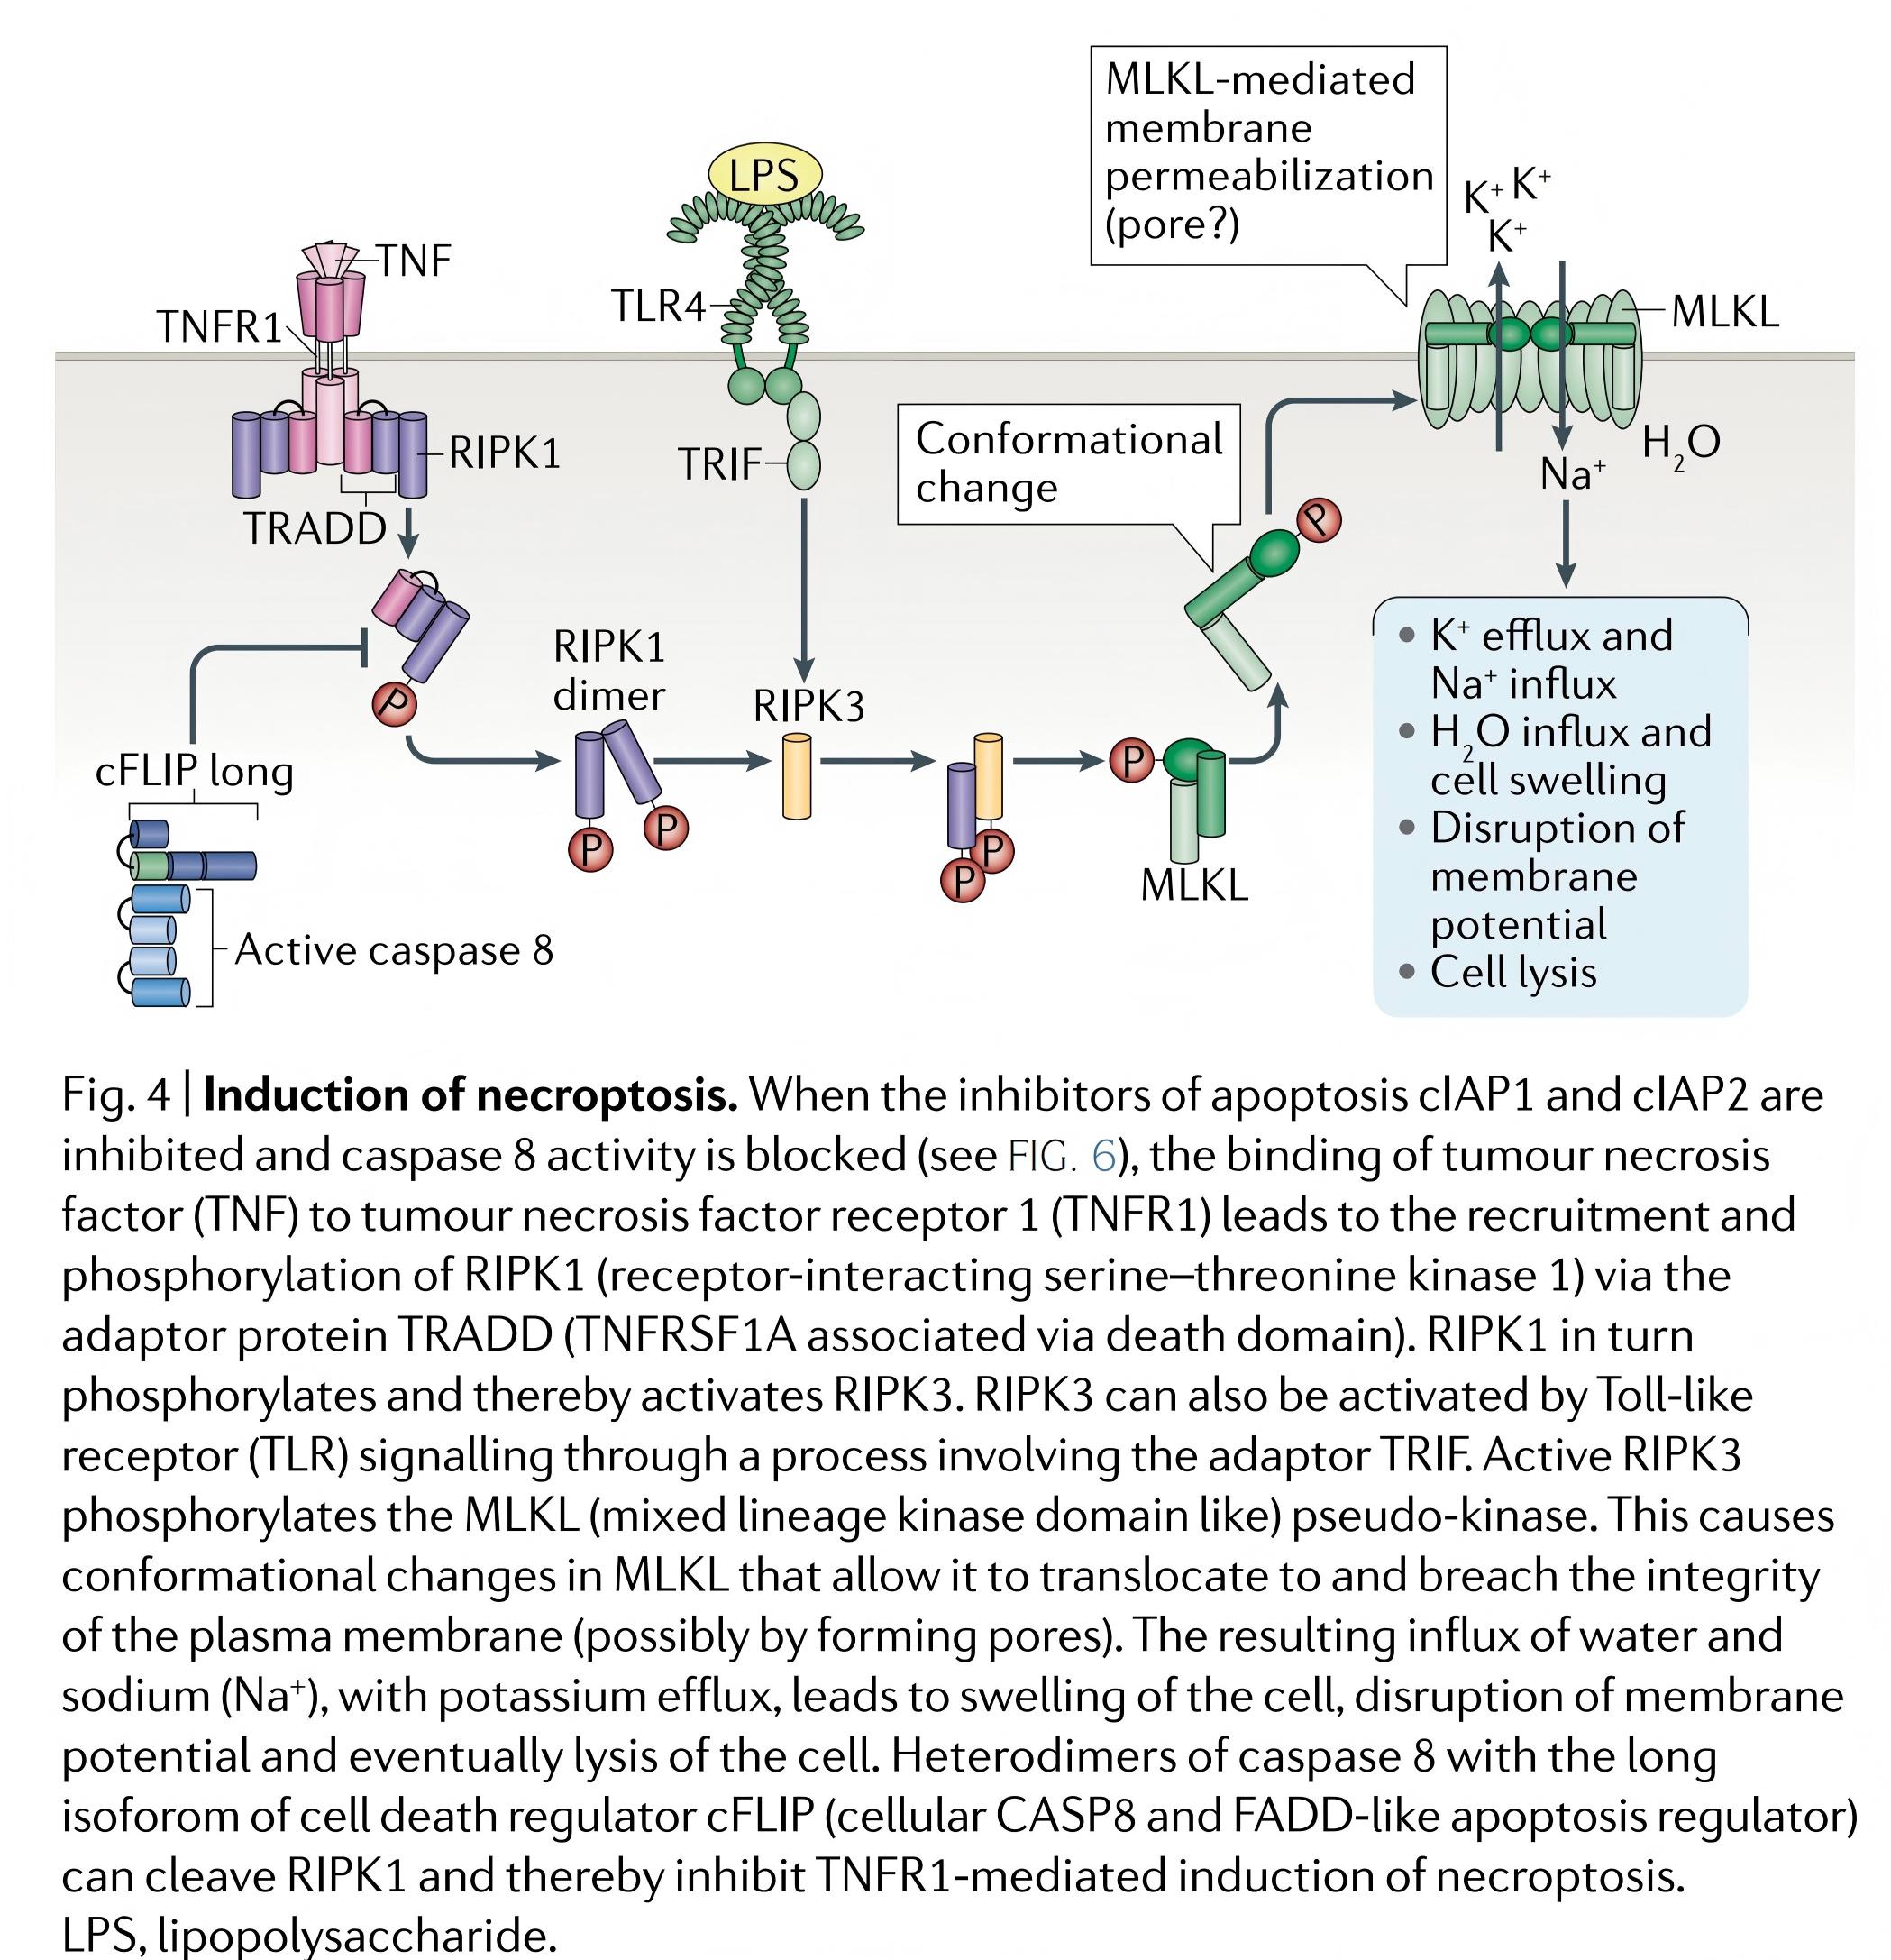
坏死性凋亡(Necroptosis):由上游 RIPK1/RIPK3 激酶复合物激活,磷酸化 MLKL 促使其寡聚化并易位至质膜打孔(图 7),以 MLKL 膜易位(Membrane Translocation,MLKL-mem) 为特异性标志(Sun 等,Cell 2012 [13])。流式通过表面染色特异性捕捉 MLKL 形成寡聚体并插入质膜打孔的终末事件;
细胞焦亡(Pyroptosis):以 GSDME-NT / GSDMD-NT 活性片段(表面染色)为标志,直接表征打孔 N-端结构域的产生(Shi 等,Nature 2015 [8];Wang 等,Nature 2017 [9]);
细胞凋亡(Apoptosis):以 cleaved caspase-3 的活性片段为标志;
铁死亡(Ferroptosis)单细胞解析:铁死亡是一种铁依赖、脂质过氧化驱动的调节性细胞死亡形式(Dixon 等,Cell 2012 [3]),缺乏特异的关键效应分子,WB 仅能检测群体的总蛋白量变化。
流式是单细胞水平研究铁死亡的有力工具:可通过测定 GPX4、SLC7A11、ACSL4 等核心蛋白的中位数荧光强度(MFI/Median 值),并在同一个巨噬细胞上同步共测多个铁死亡核心分子与细胞凋亡/细胞焦亡标志物,解析铁死亡的多个通路间的交叉对话(crosstalk)(铁死亡机制及其免疫调控综述见 Jiang 等,Nat Rev Mol Cell Biol 2021 [4];Bell 等,Immunity 2024 [5]);
体系的可扩展性:除上述经典通路外,铜死亡(Tsvetkov 等,Science 2022 [6])与双硫死亡(Liu 等,Nat Cell Biol 2023 [7])等新兴调节性细胞死亡形式的标志物,可依研究需要纳入四层 Panel,进一步拓展本框架在 2027 国自然申报中的前瞻性。
死细胞背景消除:通过可固定 Viability Dye 限定活细胞门(Live Gating),排除因破膜死细胞电荷与结构改变导致的抗体非特异吸附,确保捕获的是处于早期执行阶段(Pre-lytic Stage)的真实特异性信号。
为了将上述机制转化为国自然课题中可落地的实验方案,我们建立了针对巨噬细胞死亡异质性的四层标志物高维流式 Panel 设计框架(图 8):
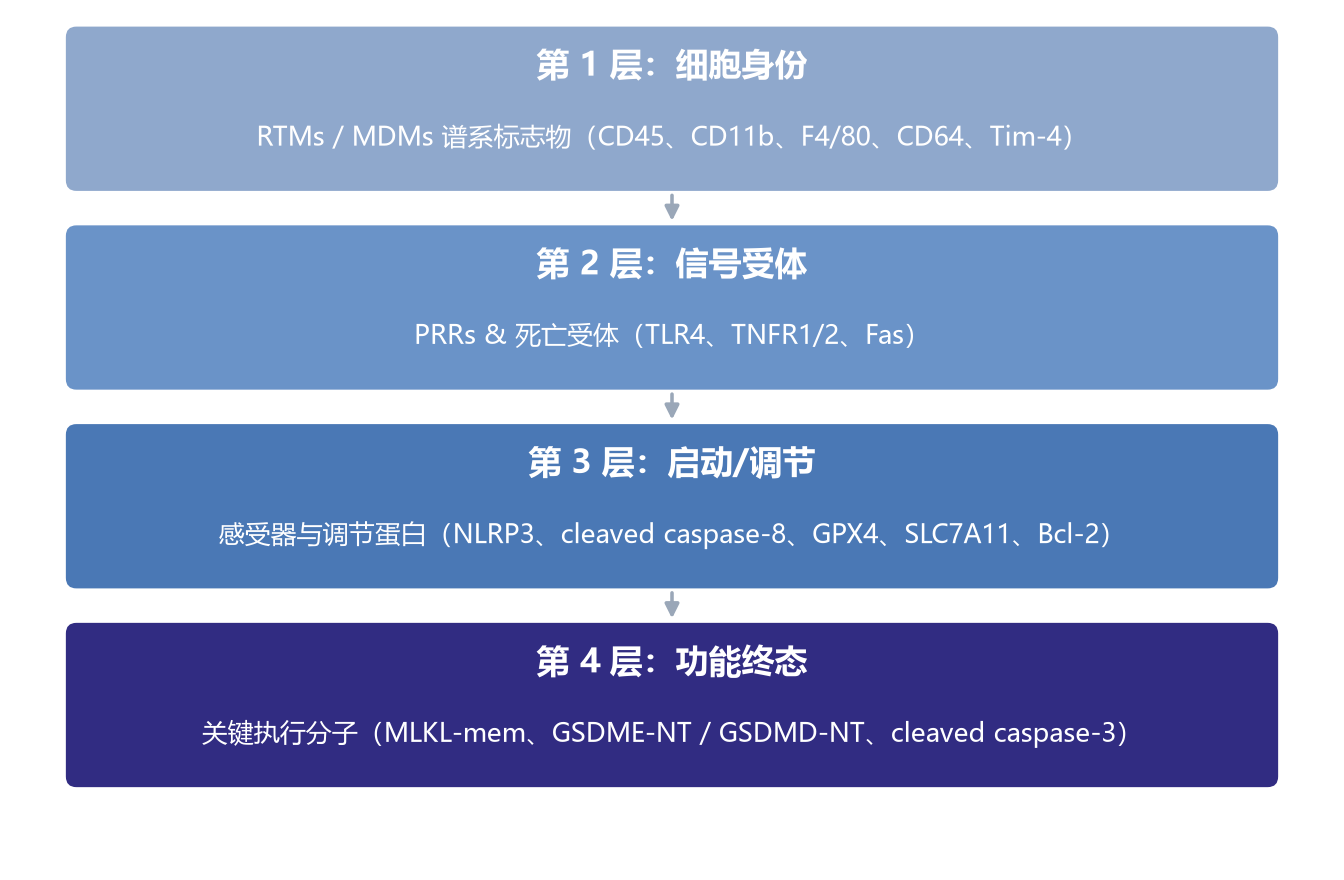
表 1:巨噬细胞死亡异质性四层标志物体系速查表
| 层级 | 功能定位 | 代表标志物 | 生物学意义与流式检测策略 |
|---|---|---|---|
| 第 1 层 · 细胞身份 | 锚定死亡的细胞亚群 | CD45, CD11b, F4/80, CD64, Tim-4等 | 区分 RTMs 与 MDMs,消除 Bulk 混淆,精确定位细胞死亡主体 |
| 第 2 层 · 信号受体 | PRRs & 死亡信号接收 | TNFR1/2, Fas, TLR4 等 PRRs | 评估 PAMP/DAMP 微环境刺激下巨噬细胞受体表达重塑 |
| 第 3 层 · 启动/调节 | 感受器与调节蛋白 | NLRP3, cleaved caspase-8, GPX4, SLC7A11, Bcl-2等 | 涵盖细胞焦亡/细胞凋亡启动分子,及铁死亡核心调节蛋白(MFI)等 |
| 第 4 层 · 功能终态 | 细胞死亡终末执行 | cleaved caspase-3, GSDME-NT / GSDMD-NT, MLKL-mem等 | 细胞凋亡/细胞焦亡/坏死性凋亡功能终态;膜表面与胞内联合染色 |
表 2:组织样本巨噬细胞死亡检测方法学对比速查表(2027 国自然申报专供)
| 评价维度 | Western Blot (WB) | 单细胞转录组 (scRNA-seq) | 高维流式细胞术 (维尔凯四层标志物检测体系) |
|---|---|---|---|
| 分辨率 | 群体平均(Bulk Tissue) | 单细胞分辨率 | 单细胞分辨率 |
| 检测层级 | 混合总蛋白累积量 | 单细胞mRNA 转录水平 | 单细胞蛋白质(功能执行单位) |
| 消化解离伪影 | 无(直接强裂解) | 极高(易诱发即刻早期基因 IEGs 假象) | 极低(检测非 IEGs/非磷酸化的稳定效应蛋白) |
| 亚群与功能终态 | 无法区分 RTMs/MDMs | 无法精确推断蛋白活性片段和蛋白易位的活性 | 精准匹配亚群身份与蛋白质功能终态 |
| 免分选近原生检测 | 否(匀浆丧失空间与亚群) | 需高活性细胞悬液,分选过程易致改变细胞mRNA水平 | 是(靶器官混合池直接多色圈门检测) |
| 铁死亡检测 | 全组织 GPX4 表达量 | mRNA 丰度(无法反映蛋白活性/脂质 ROS 共存) | 单细胞 GPX4 等 MFI 定量 + 单细胞多通路共表达 |
| 死细胞噪音剔除 | 包含死细胞裂解物 | 死细胞 mRNA 降解影响测序质量 | Live Gating 严格剔除电荷与非特异吸附噪音 |
在 新轮次的2027 国自然基金申报中,从 Western blot 的群体平均迈向高维流式的单细胞功能终态解析,是打破研究同质化、提升项目学术位势的关键一步。
南宁维尔凯生物科技有限公司依托传统流式(Beckman CytoFLEX S,4 激光 13 通道)与全光谱流式双平台,为广大科研工作者提供针对巨噬细胞死亡异质性的定制化单细胞检测服务:
[1] Karki R, Sharma BR, Tuladhar S, et al. Synergism of TNF-α and IFN-γ triggers inflammatory cell death, tissue damage, and mortality in SARS-CoV-2 infection and cytokine shock syndromes. Cell. 2021;184(1):149-168.e17. doi:10.1016/j.cell.2020.11.025
[2] Fritsch M, Günther SD, Schwarzer R, et al. Caspase-8 is the molecular switch for apoptosis, necroptosis and pyroptosis. Nature. 2019;575(7784):683-687. doi:10.1038/s41586-019-1770-6
[3] Dixon SJ, Lemberg KM, Lamprecht MR, et al. Ferroptosis: an iron-dependent form of nonapoptotic cell death. Cell. 2012;149(5):1060-1072. doi:10.1016/j.cell.2012.03.042
[4] Jiang X, Stockwell BR, Conrad M. Ferroptosis: mechanisms, biology and role in disease. Nat Rev Mol Cell Biol. 2021;22(4):266-282. doi:10.1038/s41580-020-00324-8
[5] Bell HN, Stockwell BR, Zou W. Ironing out the role of ferroptosis in immunity. Immunity. 2024;57(5):941-956. doi:10.1016/j.immuni.2024.03.019
[6] Tsvetkov P, Coy S, Petrova B, et al. Copper induces cell death by targeting lipoylated TCA cycle proteins. Science. 2022;375(6586):1254-1261. doi:10.1126/science.abf0529
[7] Liu X, Nie L, Zhang Y, et al. Actin cytoskeleton vulnerability to disulfide stress mediates disulfidptosis. Nat Cell Biol. 2023;25(3):404-414. doi:10.1038/s41556-023-01091-2
[8] Shi J, Zhao Y, Wang K, et al. Cleavage of GSDMD by inflammatory caspases determines pyroptotic cell death. Nature. 2015;526(7575):660-665. doi:10.1038/nature15514
[9] Wang Y, Gao W, Shi X, et al. Chemotherapy drugs induce pyroptosis through caspase-3 cleavage of a gasdermin. Nature. 2017;547(7661):99-103. doi:10.1038/nature22393
[10] Epelman S, Lavine KJ, Randolph GJ. Origin and functions of tissue macrophages. Immunity. 2014;41(1):21-35. doi:10.1016/j.immuni.2014.06.013
[11] Ginhoux F, Greter M, Leboeuf M, et al. Fate mapping analysis reveals that adult microglia derive from primitive macrophages. Science. 2010;330(6005):841-845. doi:10.1126/science.1194637
[12] van den Brink SC, Sage F, Vértesy Á, et al. Single-cell sequencing reveals dissociation-induced gene expression in tissue subpopulations. Nat Methods. 2017;14(10):935-936. doi:10.1038/nmeth.4437
[13] Sun L, Wang H, Wang Z, et al. Mixed lineage kinase domain-like protein mediates necrosis signaling downstream of RIP3 kinase. Cell. 2012;148(1-2):213-227. doi:10.1016/j.cell.2011.11.031