国自然 2027 联合方案 | 突破免疫细胞局限:高维流式单细胞解析肠道上皮细胞与干细胞死亡异质性
摘要:在肠道黏膜屏障与炎症性肠病(IBD)等疾病研究中,细胞死亡绝非仅发生在巨噬细胞等免疫细胞。Science(2026)最新研究揭示,IBD 中异常的上皮细胞死亡信号是一项基础性病理特征:早期炎症将肠道上皮细胞偏向M1-巨噬细胞样转录状态,启动 RIPK1 非依赖的坏死性凋亡信号,进而触发 iNOS 参与的吸收性上皮细胞线粒体凋亡与 PUMA 介导的肠道干细胞死亡。传统 Western blot(WB)匀浆丧失隐窝-绒毛轴上的细胞亚群分辨率;单细胞转录组(scRNA-seq)易受消化诱导的即刻早期基因(IEGs)干扰,且无法表征蛋白质活化终态;而流式分选与类器官共培养又会诱发失巢凋亡(Anoikis)并丢失体内巨噬细胞亚群的异质性。高维流式细胞术是免分选、近原生解析非免疫细胞(肠上皮细胞与干细胞)死亡异质性的关键工具。正确的科研范式是:先用高维流式在近原生单细胞水平确证体内上皮细胞—干细胞—巨噬细胞的死亡 Crosstalk(配体—受体—执行分子功能轴),再回到体外类器官/共培养模型做单因素归因。本篇是细胞增殖与死亡技术资讯系列的第四篇(联合方案篇),将系列前三篇聚焦的巨噬细胞死亡异质性拓展至非免疫的肠道上皮细胞与干细胞,构建屏障上皮细胞—干细胞 niche—免疫微环境联合研究方案,服务 2027 国自然申报。
一、研究背景:非免疫细胞为何是肠道屏障细胞死亡异质性的核心靶区?
不少研究者习惯性地认为流式细胞术只是免疫学研究的工具,检测细胞死亡只需关注巨噬细胞或 T 细胞。但在肠道微环境中,非免疫细胞——肠上皮细胞与隐窝干细胞——才是决定屏障完整性与组织修复命运的关键枢纽。
1. 隐窝-绒毛轴(Crypt-Villus Axis)上的死亡易感性分化
肠道干细胞(ISCs, LGR5+):位于隐窝底部,是肠道上皮自我更新与损伤修复的核心。Science(2026)最新研究(Pang 等,Science 2026 [1])与 Nature Reviews 综述(Patankar & Becker,Nat Rev Gastroenterol Hepatol 2020 [2])指出,在炎症微环境(如 TNF-α、IFN-γ 或 IL-6 刺激)下,ISCs 可被诱导表达促凋亡蛋白 PUMA,导致内源性抗凋亡蛋白(Bcl-xL)下降,触发 ISCs 线粒体凋亡,造成隐窝干细胞库枯竭。
分化肠上皮细胞(IECs, LGR5-):位于隐窝上方及绒毛区(如吸收性肠细胞),直接暴露于肠腔病原体与 PAMPs/DAMPs,高表达 TLR4 与 TNFR。在微环境应激下,IECs 更易启动 iNOS 参与的线粒体凋亡、GSDMD/GSDME 细胞焦亡或 MLKL 膜易位坏死性凋亡,导致物理屏障破损与溃疡形成(Schwarzer 等,Immunity 2020 [3])。
各类死亡方式沿隐窝-绒毛轴的空间分布与调控见图 1。

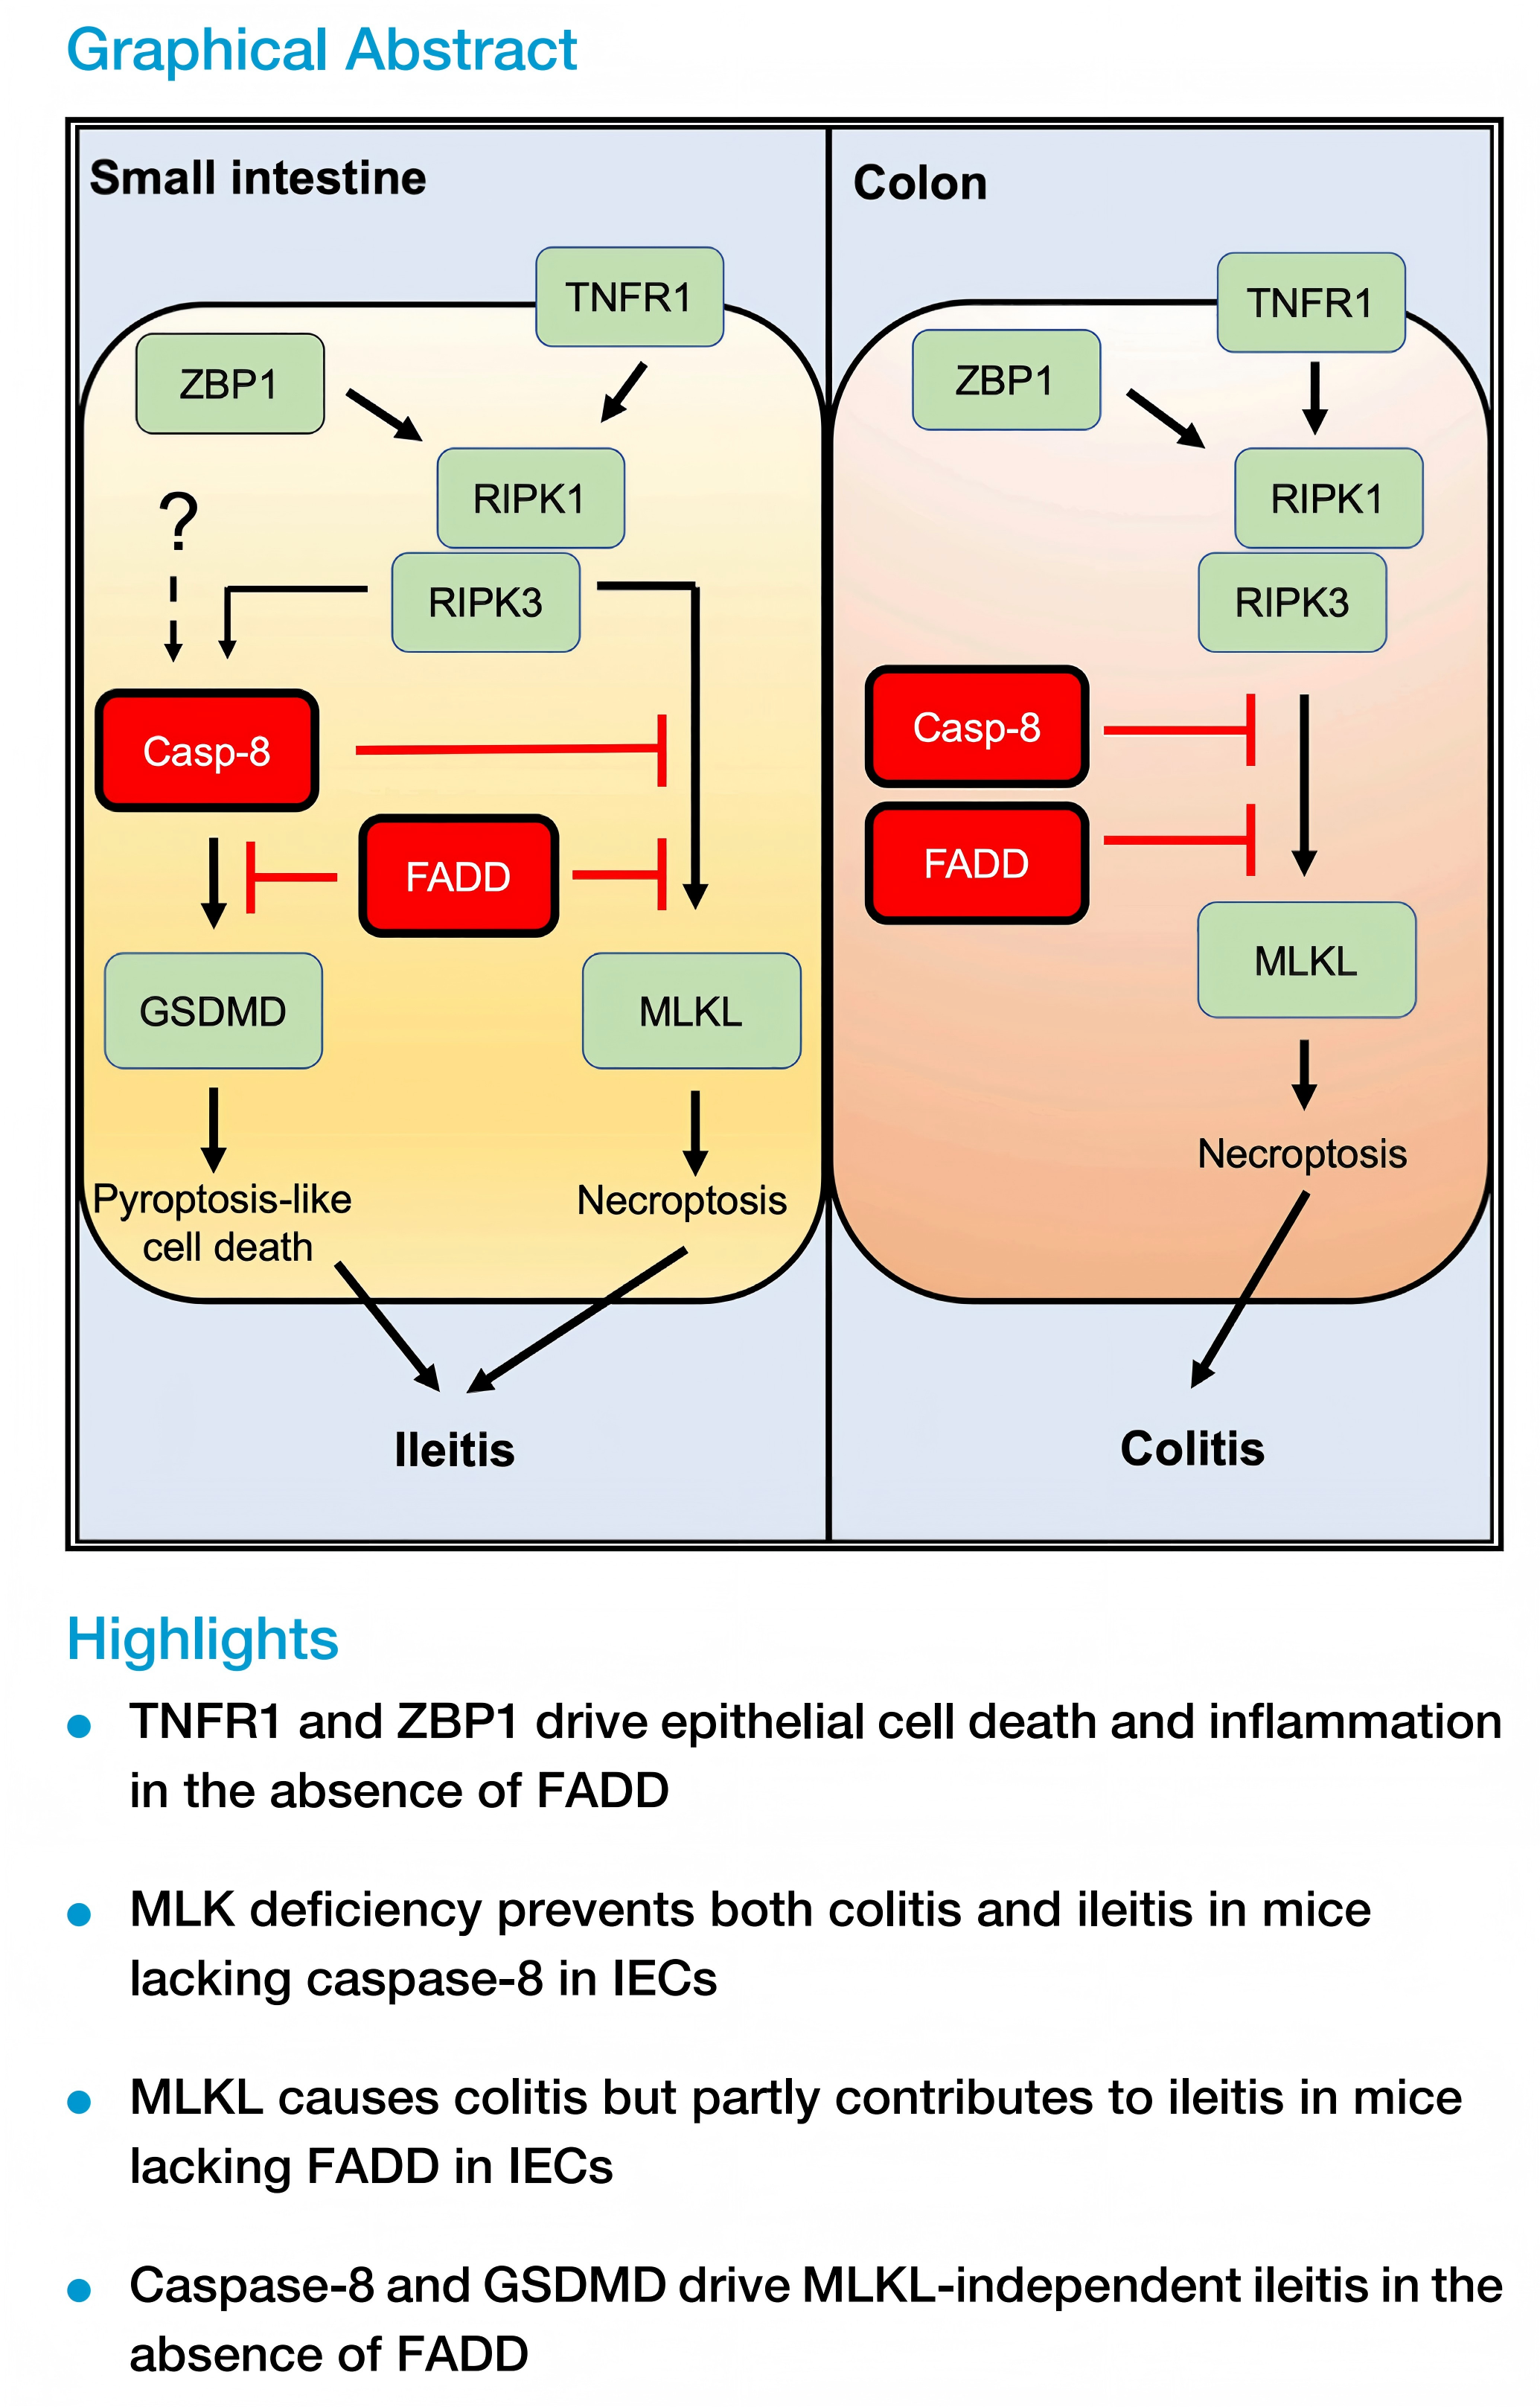
值得强调的是,Science(2026)所揭示的核心机制是一条 坏死性凋亡—细胞凋亡信号轴(necroptotic-to-apoptotic signaling axis):早期炎症将上皮细胞偏向M1-巨噬细胞样转录状态,促进 RIPK1 非依赖的坏死性凋亡信号(磷酸化 RIPK3 升高并伴随 ZBP1 表达上调),该信号随后触发 iNOS 参与的吸收性上皮细胞线粒体凋亡与 PUMA 介导的肠道干细胞死亡。这意味着,若只检测末端凋亡标志物(如 cleaved caspase-3),会漏掉上游关键的坏死性凋亡启动事件,也就无法还原 IBD 中上皮细胞死亡信号的全貌。TNFR1/ZBP1 上游信号在 Caspase-8–FADD 检查点如何发生命运分化,走向 GSDMD 介导的焦亡样死亡或 MLKL 介导的坏死性凋亡,并分别导致回肠炎与结肠炎,见图 2。
2. 构建肠道微环境(上皮细胞/干细胞—巨噬细胞)联合研究方案的必要性
肠道病理(如 IBD、缺血再灌注损伤、放射性肠炎)的本质,是免疫细胞驱动炎症与非免疫细胞屏障崩溃的恶性循环:
- 组织驻留巨噬细胞(TRM)与单核来源巨噬细胞(MDM)在微环境中释放 TNF-α、IL-6 及 IFN-γ;
- 这些细胞因子与肠腔 LPS 协同,作用于 ISCs 与 IECs 表面的受体(TNFR、CD126/IL-6R、TLR4),重编程上皮细胞死亡命运;
- 上皮细胞与干细胞死亡崩解释放的 DAMPs,反过来进一步激活巨噬细胞的 PANoptosis。
这一恶性循环的核心,在于肠上皮细胞(IEC)的死亡方式决定其与免疫细胞的双向互作方向——细胞凋亡趋向组织修复与免疫耐受,坏死性凋亡则趋向促炎正反馈,见图 3。

结论:在国自然申报中,仅检测巨噬细胞只能解释炎症诱因;唯有将巨噬细胞亚群死亡与非免疫细胞(IECs vs ISCs)死亡联合检测,才能完整拼出肠道微环境损伤与修复的全局机制图谱。(注:上述机制证据多来自小鼠模型、患者来源类器官与细胞系,外推至其他组织时需结合对应样本验证。)
二、研究方法:高维流式单细胞表征与免分选近原生解析
1. 维尔凯细胞死亡高维流式 Panel:单细胞表征肠道上皮细胞与干细胞的细胞死亡状态
为突破流式检测非免疫细胞的技术壁垒,维尔凯技术团队针对小鼠小肠组织设计了肠道上皮细胞与干细胞亚群的高维流式检测 Panel,四层标志物如下:
| 层级 | 靶点 Marker | 细胞定位/标记类型 | 生物学意义与机制功能 |
|---|---|---|---|
| 第 1 层 · 谱系排除 | CD45 / CD31 | 细胞表面(Surface) | 严格阴性圈门,排除 CD45+ 造血/免疫细胞与 CD31+ 血管内皮细胞干涉 |
| 第 1 层 · 上皮与干细胞 | EpCAM / LGR5 | 细胞表面(Surface) | EpCAM+ 锚定全部肠上皮;LGR5+ 锁定隐窝柱状干细胞(ISCs),LGR5- 锁定分化上皮(IECs) |
| 第 2 层 · 死亡受体/PRR | TNFR | 细胞表面(Surface) | 评估 TNF-α 死亡/存活信号接收能力,介导 Complex II 复合物组装 |
| 第 2 层 · 细胞因子受体 | CD126(IL-6R) | 细胞表面(Surface) | IL-6 信号受体 α 链;评估隐窝干细胞干性维持与微环境炎性应激响应 |
| 第 2 层 · 模式识别受体 | TLR4 | 细胞表面(Surface) | LPS 识别受体;评估肠腔菌群 PAMPs/DAMPs 对上皮屏障的直接 Priming |
| 第 3 层 · 抗凋亡调节 | Bcl-xL | 胞内(Intracellular) | Bcl-2 家族核心抗凋亡蛋白;拮抗 BAX/BAK 介导的线粒体外膜透化(MOMP),维持干细胞存活 |
| 第 4 层 · 功能终态执行 | cleaved Caspase-3 | 胞内(Intracellular) | 细胞凋亡功能终态;单细胞表征细胞/上皮细胞内 Caspase-3 活化活性片段 |
圈门逻辑:Viability Dye- → CD45- CD31-(排除免疫与内皮)→ EpCAM+(上皮)→ LGR5+(ISCs)/ LGR5-(IECs)。
2. 四层标志物的设计逻辑与预期应用
这套 Panel 的设计遵循从信号接收到功能终态的机制逻辑,各标志物的选择依据均来自已发表的机制研究:
- 第 2 层(受体/PRR)表征死亡信号接收端:Patankar & Becker(Nat Rev Gastroenterol Hepatol 2020 [2])与 Schwarzer 等(Immunity 2020 [3])表明,分化肠上皮细胞(IECs)直接暴露于肠腔 PAMPs/DAMPs,高表达 TLR4 与 TNFR;而隐窝干细胞(ISCs)依赖 IL-6 信号维持干性,高表达 CD126(IL-6R)。据此,同管检测 TNFR / CD126 / TLR4,可在单细胞水平区分 IECs 与 ISCs 的死亡信号接收能力。
- 第 3 层(抗凋亡调节)表征存活调节能力:Bcl-xL 是 Bcl-2 家族核心抗凋亡蛋白,通过拮抗 BAX/BAK 介导的线粒体外膜透化(MOMP)抑制线粒体凋亡。以 Bcl-xL MFI 定量 ISCs 与 IECs 的抗凋亡能力差异,可对应 Science(2026)报道的PUMA 上调 → Bcl-xL 下调 → 干细胞凋亡轴线(Pang 等,Science 2026 [1])。
- 第 4 层(功能终态)确证细胞死亡执行:cleaved Caspase-3 是细胞凋亡的功能终态标志,用于单细胞表征上皮细胞/干细胞是否已启动不可逆的凋亡执行程序。
这套 Panel 的应用场景是:在不依赖流式分选的条件下,于单细胞分辨率同时回答在何种微环境刺激下,哪一类上皮细胞、经哪条死亡程序走向终末死亡表型这一核心科学问题,并与免疫细胞 Panel 的死亡表型联合,还原肠道微环境中免疫细胞与非免疫细胞的死亡 Crosstalk 全貌。
四层标志物在 IEC 死亡分子通路中的对应定位见图 4。

3. 范式升级:为何流式近原生解析体内细胞死亡功能终态优于流式分选/体外共培养?
在实体组织非免疫细胞(上皮细胞/干细胞)与免疫细胞的 Crosstalk 研究中,传统路径存在关键的方法学误区:
(1)传统流式分选/类器官共培养的局限。研究常试图通过磁珠(MACS)或 FACS 物理分选纯化上皮细胞后与巨噬细胞共培养,或利用肠类器官(Enteroids)与巨噬细胞共培养再提取蛋白做 WB。这种做法存在两方面局限:其一,丢失体内异质性与协同微环境——体外共培养丢掉了体内肠道巨噬细胞亚群(TRM vs MDM)固有的发育与功能异质性,也脱离了体内DAMPs/PAMPs × 细胞因子梯度差 × 低氧的多信号协同调控,无法还原体内真实的受体-配体互作状态;其二,诱发失巢凋亡(Anoikis)假阳性——肠上皮细胞高度依赖整合素(Integrins)与基底膜 ECM 的物理粘附,脱离基质的物理分选过程会诱发严重的失巢凋亡(Patankar & Becker,Nat Rev Gastroenterol Hepatol 2020 [2]),造成细胞状态改变假象。
(2)正确的科研范式:流式近原生确证体内 Crosstalk → 体外共培养单因素归因。第一步(流式近原生确证体内 Crosstalk):无需物理分选上皮细胞,直接在靶器官混合单细胞悬液中,通过 CD45- CD31- EpCAM+ LGR5± 圈门锁定,同步检测上皮/干细胞与巨噬细胞亚群的配体-受体表达及细胞死亡执行蛋白,在近原生状态下确证体内真实发生的细胞死亡 Crosstalk 信号轴;第二步(体外模型单因素归因):在流式确证体内细胞亚群的配体-受体互作与细胞死亡表型后,再针对性建立肠类器官(Enteroids)共培养模型,通过敲除特定受体或加入单因子(如 TNF-α 或 IL-6 抑制剂)进行单因素因果归因。
(3)克服 scRNA-seq 的消化诱导即刻早期基因(IEGs)假象。scRNA-seq 在 37°C 酶解消化过程中,上皮细胞会急剧转录出大量即刻早期基因(IEGs,如 Fos、Jun、Egr1)(van den Brink 等,Nat Methods 2017 [7]),干扰细胞死亡转录谱分析。高维流式选择检测 Bcl-xL 蛋白量(MFI)与 cleaved Caspase-3 活性片段,非 IEGs 且为蛋白质功能执行终态,受消化应激干扰较小。
(4)Live Gating 严格剔除死细胞电荷与非特异吸附。肠道消化悬液中含有大量因消化破坏的细胞碎片与晚期破膜死细胞。通过 Viability Dye 限定活细胞门(早期执行期/细胞裂解前期),剔除破膜死细胞的电荷吸附噪声,确保测得的 cleaved Caspase-3+ 为真实特异的生物学信号。
三、方法论总结:四步递进联合方案与方法学对比
1. 2027 国自然四步递进联合方案
针对肠道微环境(上皮细胞—干细胞—巨噬细胞)死亡异质性,维尔凯提炼出四步递进研究逻辑链:
| 步骤 | 研究内容 |
|---|---|
| ① 现象(Bulk 基础) | 全组织 WB / Calprotectin(S100A8/A9)/ 屏障通透性检测,发现损伤现象 |
| ② 高维流式确证表型(核心创新点) | 高维流式 Panel:近原生同步解析体内上皮细胞(IEC)/干细胞(ISC)与巨噬细胞(TRM/MDM)的蛋白质功能终态与 Crosstalk |
| ③ 单细胞组学挖机制 | 对确证细胞死亡表型的上皮细胞/干细胞亚群做 scRNA-seq / scATAC-seq,分析 PUMA/iNOS 转录网络与受体重构 |
| ④ 体外类器官单因素归因 | 建立 Enteroid 类器官共培养模型,通过基因 Knockout 与单因子干预进行因果归因 |
典型课题逻辑(以 IBD/肠屏障损伤为例):Bulk 现象(全组织 WB 发现 cleaved Caspase-3 升高、Calprotectin 上升)→ 高维流式确证(免疫细胞侧解析 MDM 是否发生 GSDME-NT+ MLKL-mem+ PANoptosis;非免疫细胞侧解析 CD45- CD31- EpCAM+ LGR5+ 隐窝干细胞是否呈 CD126+ TNFR+ Bcl-xL-low cleaved-Caspase-3+,即干细胞线粒体凋亡是否被启动)→ 组学机制(对精准确证的细胞亚群正交分析 scRNA-seq,挖掘 JAK/STAT1、PUMA 等上游转录网络)→ 类器官归因(建立肠道类器官,敲除 Bbc3/PUMA 或 Nos2,验证其对特定巨噬细胞因子诱导干细胞凋亡的保护作用)。
2. 肠道微环境细胞死亡检测方法学对比速查表
| 评价维度 | Western Blot(WB) | 单细胞转录组(scRNA-seq) | 体外纯化/类器官共培养 | 高维流式细胞术(维尔凯联合 Panel) |
|---|---|---|---|---|
| 检测层级 | 全组织总蛋白裂解液 | 单细胞 mRNA 转录表达 | 体外简化模型 | 单细胞分辨率蛋白质水平解析体内细胞死亡表型与功能终态 |
| 亚群与微环境 | 丧失亚群微环境 | 丧失空间旁分泌 | 缺失体内巨噬亚群异质性与协同因子 | 近原生保留体内巨噬亚群—上皮细胞—干细胞Crosstalk |
| 解离/失巢伪影 | 无(直接匀浆) | 极高(消化诱导 IEGs 假象) | 极高(物理分选强诱发 Anoikis 假阳性) | 极低(免分选圈门,检测稳定活性片段与 Bcl-xL) |
| 定位与功能 | 无法区分 ISCs/IECs | 无法反映蛋白剪切/膜易位 | 适用于单因素归因 | 单细胞精准确证 LGR5+ ISCs 与 EpCAM+ IECs 的细胞死亡表型 |
| 死亡功能终态 | 终末累积总量 | 无法反映蛋白剪切/膜易位 | 需结合荧光/蛋白检测 | 直接测定单细胞活化 Caspase-3 / Bcl-xL MFI 定量 |
四、结语
在 2027 国自然申报中,将细胞死亡异质性研究从只测免疫细胞拓展到非免疫的上皮细胞与干细胞,并与免疫微环境联合解析,是打破研究同质化、提升项目学术位次的重要一步。
南宁维尔凯生物科技有限公司依托传统流式(Beckman CytoFLEX S,4 激光 13 通道)与全光谱流式双平台,为研究者提供针对肠道微环境细胞死亡异质性的定制化单细胞检测服务:
- 非免疫细胞与免疫细胞联合 Panel 体系:提供针对小鼠/人源肠道组织的非免疫细胞 Panel(CD45- CD31- EpCAM+ LGR5±)与免疫细胞 Panel(CD45+ CD11b+ F4/80+ CCR2±),同步测定 TNFR、CD126、TLR4 受体及 Bcl-xL、cleaved Caspase-3、GSDME-NT、MLKL 膜易位等细胞死亡执行蛋白;
- 免分选近原生组织解离 SOP:针对肠道黏膜开发温和酶解与高维流式全流程质控,在免分选条件下保留高活性单细胞悬液,避免失巢凋亡(Anoikis)伪影;
- 2027 国自然申报深度赋能:协助研究者建立流式确证体内 Crosstalk → 体外类器官共培养单因素归因的严密逻辑闭环,提供符合 Science、Cell、Immunity 等期刊要求的出刊级数据与完整证据链。
参考文献
[1] Pang J, Al-Ani AH, Patel KM, et al. A necroptotic-to-apoptotic signaling axis underlies inflammatory bowel disease. Science. 2026;393(6814):875. doi:10.1126/science.aeh7112
[2] Patankar JV, Becker C. Cell death in the gut epithelium and implications for chronic inflammation. Nat Rev Gastroenterol Hepatol. 2020;17(9):543-556. doi:10.1038/s41575-020-0326-4
[3] Schwarzer R, Jiao H, Wachsmuth L, et al. FADD and caspase-8 regulate gut homeostasis and inflammation by controlling MLKL- and GSDMD-mediated death of intestinal epithelial cells. Immunity. 2020;52(6):978-993.e6. doi:10.1016/j.immuni.2020.04.002
[4] van Loo G, Bertrand MJM. Death by TNF: a road to inflammation. Nat Rev Immunol. 2023;23(5):289-303. doi:10.1038/s41577-022-00792-3
[5] Boehmer D, Zanoni I. Interferons in health and disease. Cell. 2025;188(17):4480-4504. doi:10.1016/j.cell.2025.06.044
[6] Karki R, Sharma BR, Tuladhar S, et al. Synergism of TNF-α and IFN-γ triggers inflammatory cell death, tissue damage, and mortality in SARS-CoV-2 infection and cytokine shock syndromes. Cell. 2021;184(1):149-168.e17. doi:10.1016/j.cell.2020.11.025
[7] van den Brink SC, Sage F, Vértesy Á, et al. Single-cell sequencing reveals dissociation-induced gene expression in tissue subpopulations. Nat Methods. 2017;14(10):935-936. doi:10.1038/nmeth.4437